Gezegenimizdeki Yaşamın Tarihçesi (5. bölüm)
(Son güncelleme 2026)
← 4. bölüme dönmek için tıklayın
Önceki bölümde, yaklaşık 252 milyon yıl önce meydana gelen ve gezegenimizin tarihinde yaşanan en büyük kitlesel tükenme olayı olan Permiyen–Trias (Pe–Tr) Yok Oluşuna kadar gelmiştik. Hatırlarsanız “Büyük Ölüm” diye de anılan bu tükenme olayıyla deniz canlısı türlerinin yaklaşık %81–94’ü yok olmuş, karasal ekosistemler de çok ağır kayıplara uğramıştı. Şimdi de, canlılığın bu felaketten sonra nasıl toparlandığına değinerek evrimsel tarihçemizde biraz daha yol alacağız. Ama öncelikle gezegenimizin o zamanki jeolojik durumuna kısaca bir göz atalım.
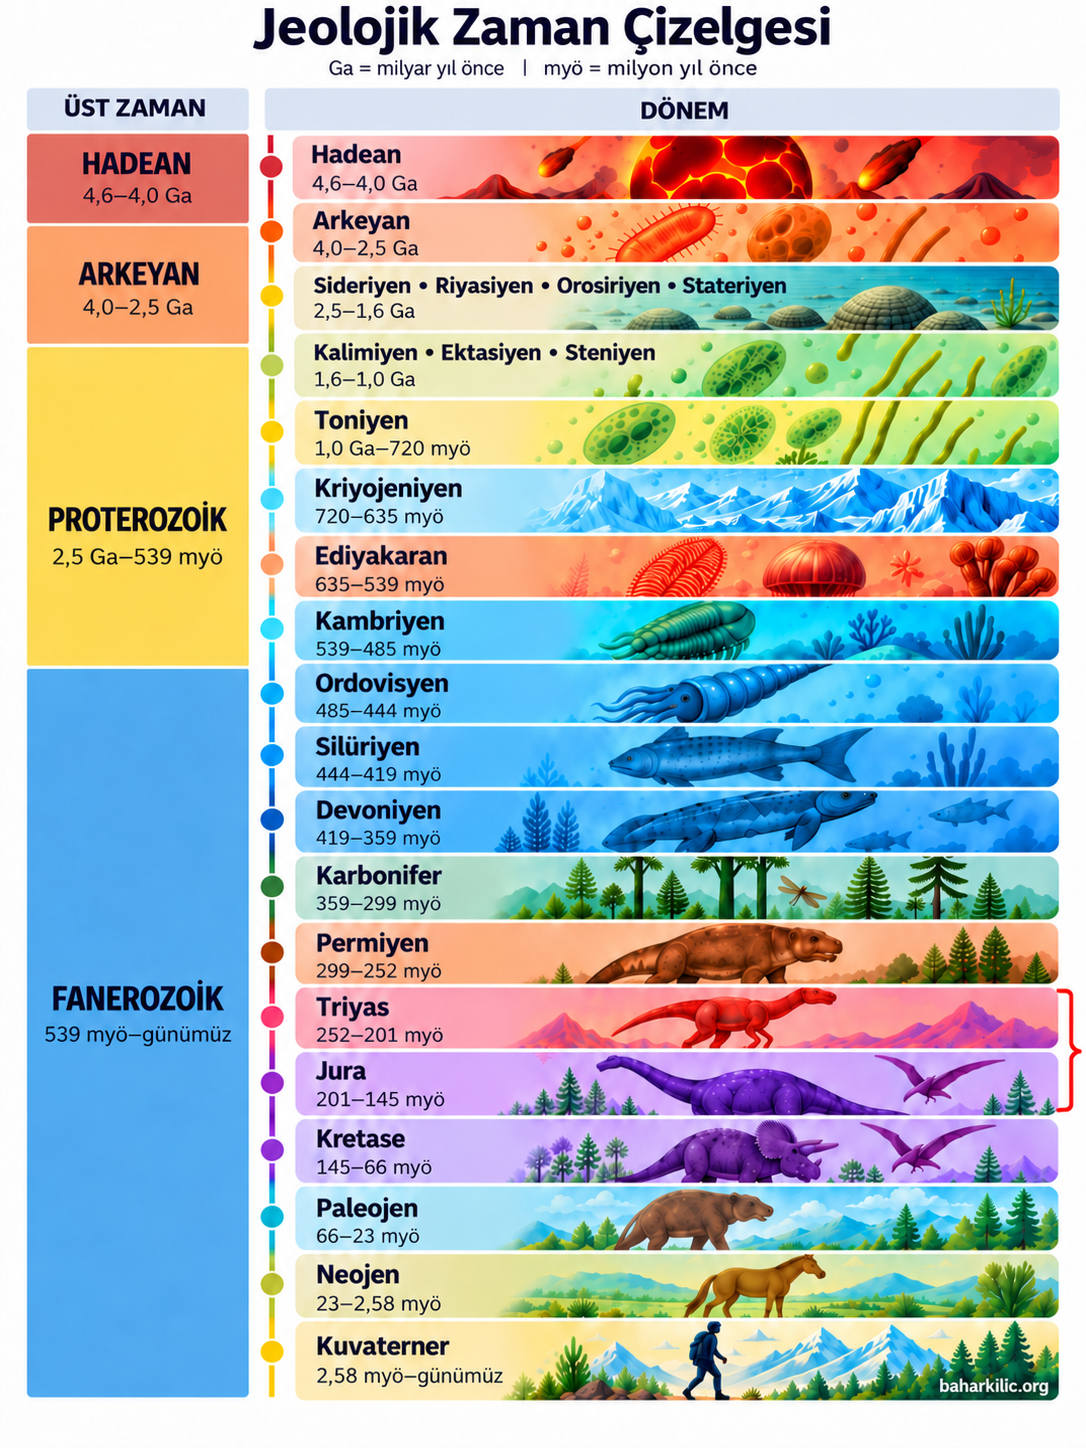
Ga = milyar yıl önce
myö = milyon yıl önce
Pe–Tr Yok Oluşu ile başlayan Mezozoik Zamanda volkanik, iklimsel ve evrimsel aktiviteler oldukça yoğundu. Mezozoik Zaman 252–66 milyon yıl önceki zaman aralığını kapsar ve eskiden yeniye doğru sırasıyla şu üç dönemden oluşur: Trias, Jura ve Kretase. Permiyen Dönemde oluşumu tamamlanan Pangea süperkıtası, Trias’ın sonlarına kadar varlığını sürdürdü ve Jura Döneminde (yaklaşık 175 myö) parçalanarak iki ana kara kütlesine ayrılmaya başladı: kuzeyde Lavrasya, güneyde Gondvana. Bu parçalanma gerçekleşmeden önce, dev bir kara kütlesi olan Pangea’nın çoğu kesimi denizden uzak olduğu için Trias Döneminde iklim genellikle sıcak ve kuraktı; Pangea’nın iç kısımları çöllerle kaplıydı, kutup bölgeleri kışın bile soğuk değildi ve bölgeler arasında ciddi sıcaklık farkları mevcuttu. Pangea’nın yavaş yavaş parçalanması ve dolayısıyla kıyı şeritlerinin artmasıyla iklim daha nemli, ılıman ve stabil hâle geldi. Kretase’nin sonlarına gelindiğinde, atmosferdeki karbondioksit seviyesi artarak gezegenin ısısını hapsetmeye başlamıştı. Dolayısıyla genel sıcaklık günümüzdekinden epey yüksekti. Kıtaların hareketiyle meydana gelen bu ve benzeri değişiklikler, canlıların evriminde her zamanki gibi önemli bir rol oynadı.
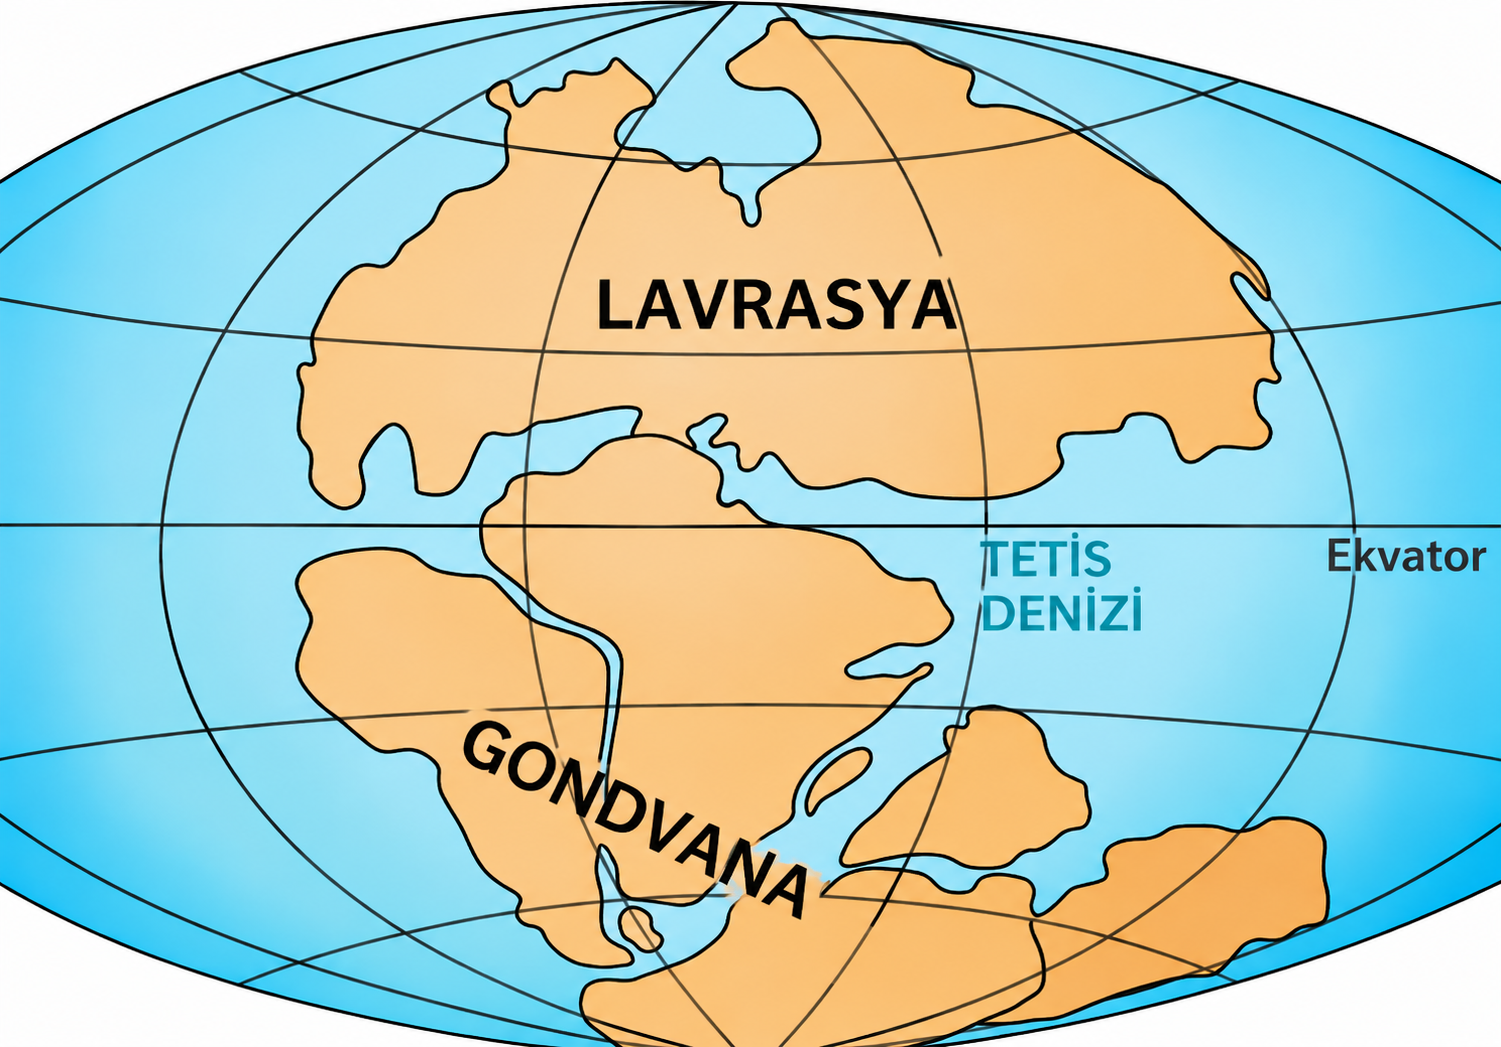
Resim: Pangea süperkıtası parçalanarak Lavrasya ve Gondvana karalarına ayrıldı.
Pe–Tr Yok Oluşundan sağ çıkmayı başaran sayılı tür, zamanla çeşitlenerek biyosferi yeniden canlandırdı. Fırsatçı organizmaların (Lystrosaurus, Claraia, Eumorphotis, Unionites, Promylina gibi) boşalan alanları hızla doldurduğu bu felaket sonrası dönemde, karmaşık ekosistemler oluşturma yeteneğine sahip özelleşmiş hayvanların toparlanması oldukça uzun bir zaman aldı. Canlılığın toparlanması tüm gruplarda aynı hızda gerçekleşmedi. Bazı gruplar yok oluşun ardından hızla çeşitlenirken, karmaşık ekosistemlerin yeniden kurulması Erken ve Orta Trias boyunca devam etti ve milyonlarca yıl sürdü. Bu uzun toparlanma sürecinde aşırı sıcaklıklar, okyanuslardaki oksijensizleşme ve tekrarlanan çevresel krizler önemli rol oynadı. Erken Trias’ın bazı evrelerinde tropikal deniz yüzeyi sıcaklıkları 38–40 °C’yi aşmış olabilir.
Deniz yaşamı:
Trias Döneminde Mezozoik Deniz Devrimi (MDD) olarak adlandırılan uzun süreli bir evrimsel süreç belirginleşmeye başladı. Paleozoik Fauna ile Modern Fauna arasında önemli bir geçiş sürecinin parçası olan bu dönemde, kabuklu yumuşakçalar ve diğer sert kabuklu deniz omurgasızlarıyla beslenen yırtıcılar (durofajlar) çeşitlendi. Bu durofaj yırtıcılar arasında placodontlar, Omphalosaurus, bazı kabuk kırıcı balıklar ve köpekbalıkları sayılabilir. Ortaya çıkan bu avcı baskısı, kabuklu deniz omurgasızlarının yeni savunma ve korunma yöntemleri geliştirmesine yol açtı. Tutundukları bölgeye yeniden yapışamayan hareketsiz hayvan türleri (dallı bacaklılar, deniz zambakları, karından bacaklılar, midyeler gibi) kolay avlar hâline gelirken, avcılardan saklanabilen veya kaçabilen hızlı ve kıvrak türler evrimsel bir avantaj kazanmış oldu. MDD’nin sonuçları, günümüz omurgasızlarında da gözlemlenebilir.
Canlılar, Trias Döneminde yepyeni hayatta kalma yolları geliştirdi. Ancak ortaya çıkan çeşitlenme düzenli olmaktan çok uzaktı. Buna karşın balık faunası oldukça düzenliydi, ki bu da ne kadar az sayıda balık familyasının Pe–Tr’ı atlatabildiğine işaret eder. Günümüzde yaşayan birçok balık türünü kapsayan teleost balıklar Trias Döneminde ortaya çıktı. Teleost balıklar, ışınsal yüzgeçliler (Actinopterygii) içinde yer alan büyük bir gruptur (bu yazı dizisinin 3. bölümünde detaylı anlatılmıştı). Mezozoik ve Senozoik Zamanlarda daha da çeşitlenerek artan teleost balıklar, şu anda bilinen tüm balık türlerinin %96’sını kapsar.
Yeni evrimleşen taş mercanları, Devoniyen Dönemde ve günümüzde görülen dev resiflere kıyasla oldukça mütevazı sayılabilecek küçük resifler oluşturdu. Böylece resif ekosistemleri yenilenmeye başladı.
Başarılı yumuşakçalardan olan ammonitlerin Pe–Tr’tan sağ çıkan tek bir soy hattı hızla evrimleşerek, eskisine göre çok daha yüksek bir çeşitliliğe ulaştı ve açık denizlerin omurgasızlar dünyasında baskın hâle geldi. Neredeyse tamamen yok olan derisidikenliler Trias Döneminde tekrar çeşitlenerek artarken, dallıbacaklılar hiçbir zaman tam olarak toparlanamadı. Bu süreçte özellikle iki derisidikenli sınıfında birçok yeni tür evrimleşti: Euechinoidea (deniz kestaneleri) ve Asteroidea (deniz yıldızları).
Sürüngen Çağı diye de adlandırılan Mezozoik Zamanda birçok su sürüngeni yaşıyordu. Bazen hatalı bir şekilde dinozor sanılan bu su sürüngenlerine örnek olarak Sauropterygia (Pachypleurosaur, Nothosaurus, Placodont, Plesiosaurus ve Pliosaurus gibi), ilk thalattosaurlar (Askeptosaurus gibi) ve oldukça başarılı bir grup olan ihtiyozorlar verilebilir.
İlk örnekleri 245 myö görülmeye başlanan Sauropterygia üst takımı, karasal atalardan evrimleşen (yani karadan suya geri dönen), Mezozoik Zamanda çeşitlenerek denizlerde yaygınlaşan, Mezozoik’in sonunda da nesli tükenen su sürüngenlerini tanımlar. Bu grubun deniz yaşamına uyumu sırasında uzuvlar ve omuz kuşağında önemli anatomik değişiklikler meydana geldi. Özellikle plesiosaurlarda ön ve arka uzuvlar yüzgeç biçimini alarak su altında hareket etmeye uyum sağladı.
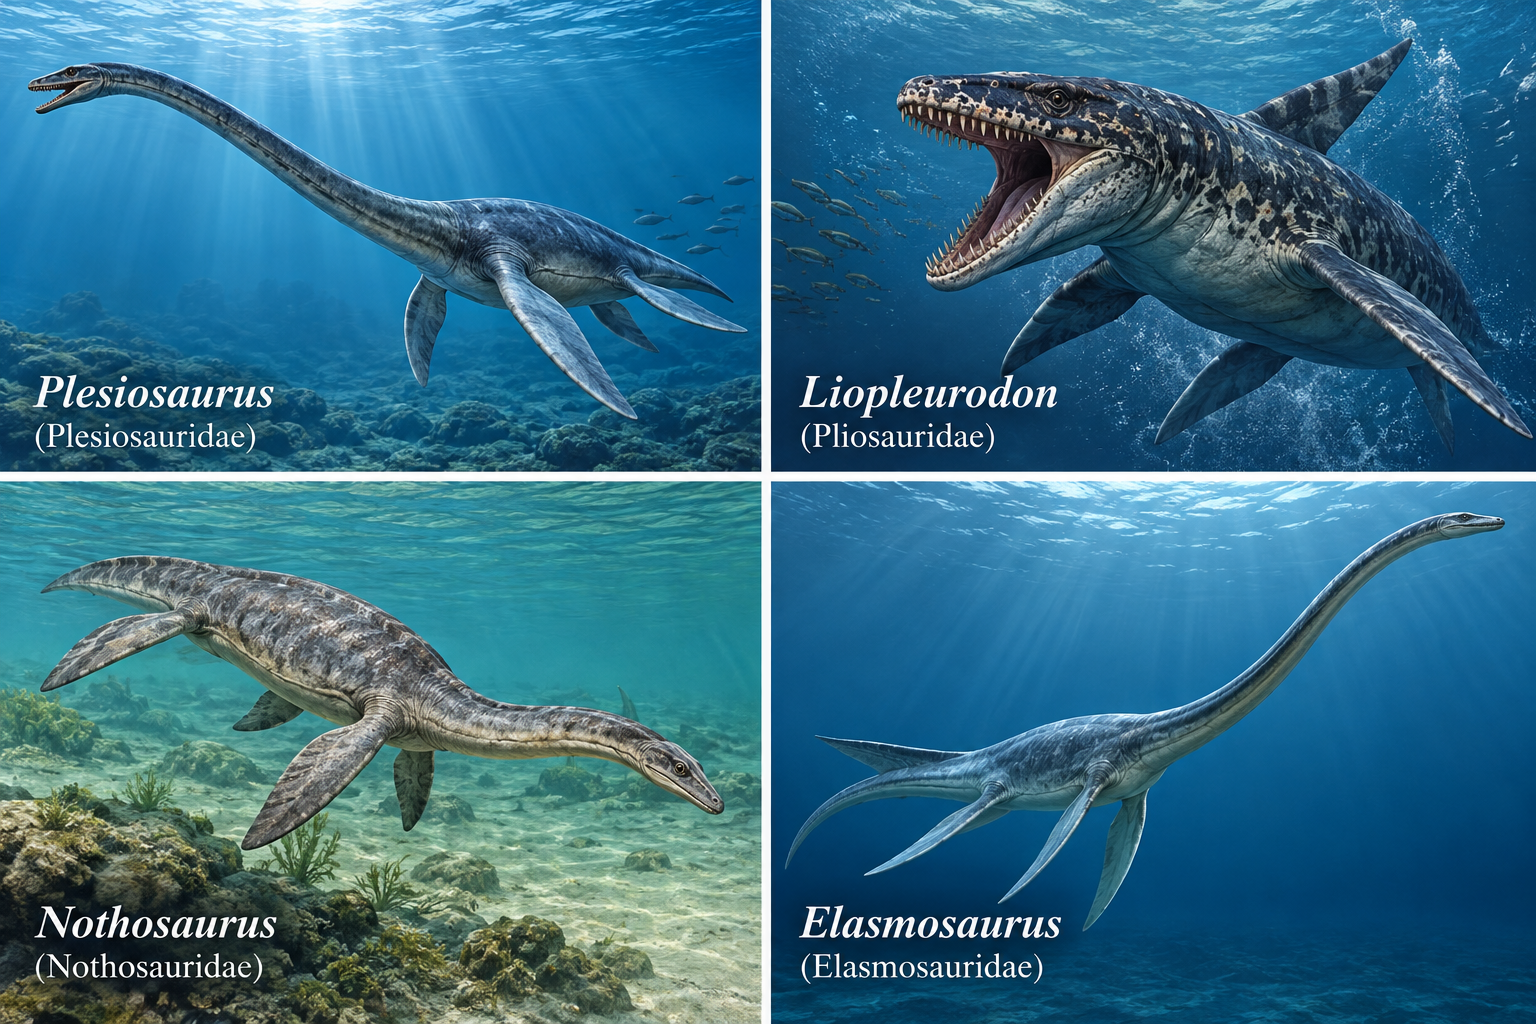
Resim: Sauropterygia grubunun farklı üyeleri: Plesiosaurus, Liopleurodon, Nothosaurus ve Elasmosaurus
İlk örnekleri 250 milyon yıl öncesine uzanan ihtiyozorların kökeni de yine karadan suya geri dönen bir grup kara sürüngenine dayanır. 1–16 metre uzunluğa erişebilen ihtiyozorlar, özellikle Trias ve Jura dönemlerinde deniz ekosistemlerinin önemli avcıları arasındaydı. Geç Trias’ın sonlarında ortaya çıkan plesiosaurlar da Jura ve Kretase boyunca denizlerde çeşitlenerek yaygınlaştı. İhtiyozorların nesli, Geç Kretase’nin Senomaniyen evresinin sonunda, yaklaşık 94 myö tükendi. Yok oluşlarının kesin nedeni bilinmemekle birlikte, küresel çevresel değişimlerin önemli rol oynadığı düşünülmektedir.
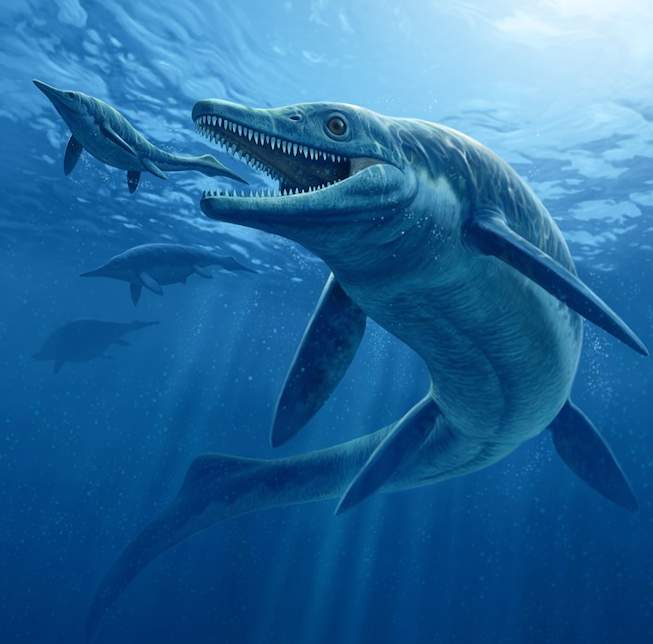
Resim: Durofaj yırtıcılardan biri olan Ichthyosaurus
Kara yaşamı:
Pe–Tr Yok Oluşu sırasında karasal bitki örtüsünde önemli değişimler yaşandı; ancak güncel çalışmalar, bitkilerin hayvanlardakine benzer küresel bir kitlesel yok oluş yaşadığına ilişkin kanıtların güçlü olmadığını gösteriyor. Trias Döneminde görülen bitki toplulukları, Permiyen florasından hem bileşimleri hem de ekosistemdeki yayılımları bakımından oldukça farklıydı. Trias’ın erken dönemlerinde en yaygın görülen bitkilerden birisi Pleuromeia oldu (sporlu ağaçlardan oluşan fırsatçı bir cins). İklimin çok önemli bir rol oynadığı bu çeşitlenme sürecinde Pleuromeia gibi fırsatçı bitkiler, canlıların yeniden kolonizasyonu için gerekli koşulları yarattı. Tohumlu bitkiler karasal habitatlarda baskın hâle geldi. Permiyen sonlarında baskın olan kozalaklı bitkiler, Trias’ın ilk birkaç milyon yılında ender görüldü; ta ki Trias ortalarında, özellikle kuzey yarı kürede yeni kozalaklı bitki türleri evrimleşinceye kadar. Permiyen boyunca ve Trias’ın başlarında güney yarı küredeki en baskın bitki türlerinden olan glossopteridler (Glossopteris), yerlerini Dicroidium gibi tohumlu eğreltilere bırakmaya başladı. İlk kez Trias’ta ortaya çıkan Bennettitales ve Permiyen’den beri varlığını sürdüren Cycadales gibi tohumlu bitki takımları da yine dönemin karasal bitki örtüsünü oluşturan önemli üyelerindendi.
Bir önceki yazıda tanıştığımız terapsidler de birçok kara hayvanı gibi Pe–Tr Yok Oluşundan ciddi anlamda etkilendi. Gorgonopsianlar tamamen yok olurken, geriye kalan gruplarda (disinodontlar, sinodontlar, terosefaliyanlar) da sayılı tür hayatta kaldı. Özellikle etobur olan dev boyutlu gorgonopsianların ve otobur olan pareiasaurların yok olmasıyla boşalan ekolojik yaşam alanlarını, geriye kalan bu sayılı tür doldurdu. Bu gruplar Trias’ın başlarında ve ortalarında çeşitlenerek geniş bir yayılım gösterdi; ancak sonraki evrimsel tarihleri birbirinden farklı oldu. Trias Döneminde gomfodont sinodontlar (Gomphodontia) ve rhynchosaurlar çeşitlendi. (Önceki yazıdan hatırlayacağınız gibi, sinodont (cynodont) kelimesi “köpek dişi” anlamına gelir. Memelileri de kapsayan sinodontlar, Permiyen’in sonlarında ortaya çıkan bir terapsid grubuydu.)
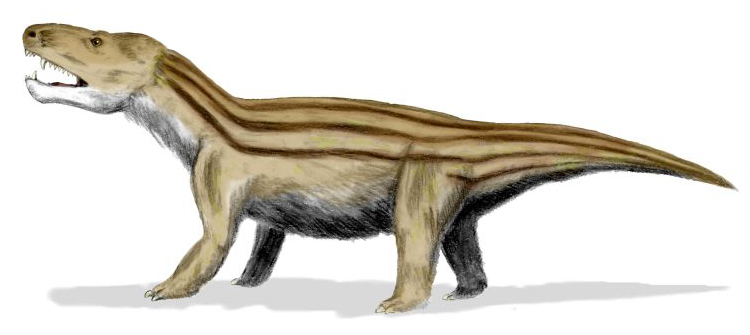
Resim: Eucynodontia

Resim: Rhynchosaur
Trias’ın erken dönemlerinde ortaya çıkan pseudosuchianlar, altın çağları olan Trias’ın sonlarında karaların baskın etoburları hâline geldi. Pseudosuchianlar, timsahsıları (Crocodilia takımı) ve timsahsıların soy hattına dâhil olan tüm arkozorları kapsar. Pseudosuchianların büyük bölümü Trias’ın sonunda gerçekleşen kitlesel yok oluşta ortadan kalkarken, crocodylomorphlar (Crocodylomorpha) varlığını sürdürdü. Trias sonundaki yok oluşun ardından dinozorlar karasal ekosistemlerde giderek daha baskın hâle gelirken, crocodylomorphlar da Jura boyunca farklı ekolojik ortamlara yayılarak çeşitlendi.
Dinozorlar Çağı başlıyor…
Dinozorların tartışmasız en eski fosil kayıtları yaklaşık 233–230 myö Geç Trias’a tarihlenir. Bu ilk dinozorlar uçamayan kara hayvanlarıydı. “Dinozor” kelimesi her ne kadar “korkunç kertenkele” anlamına geliyor olsa da bu, hatalı bir tanımdır; çünkü dinozorlar kertenkele değildir, sürüngenler içerisinde başlı başına bir gruptur.
Bilinen en eski dinozorlar, genellikle küçük yapılı ve bipedal (iki ayak üzerinde yürüyen) hayvanlardı. Atasal olarak bipedal olsalar da birçok dinozor grubunda dört uzuv kullanımı da görülür. Paleontologlar, fosil kayıtlarından elde edilen verilere dayanarak hem otobur hem de etobur türleri bulunan Dinosauria kladında 1000’den fazla tür tanımlamıştır. Dinozorların metabolizma ve vücut sıcaklığı düzenleme biçimleri uzun süredir tartışılmaktadır. Güncel bulgular, atasal dinozorlarda yüksek metabolizma hızlarının bulunduğunu, ancak bazı dinozor soylarında metabolik özelliklerin zaman içinde farklılaştığını düşündürmektedir. Kutup bölgelerinde bulunan dinozor fosilleri de bazı dinozorların soğuk ve mevsimsel iklim koşullarında yaşayabildiğini göstermektedir. İlk fosilleri 19. yüzyılda bulunan dinozorlar boynuz, sorguç, kemikli zırh veya dikensi plaka gibi yapılara sahiptir. Dinozorlar yumurtlayarak ürüyordu; ancak tüm dinozor yumurtaları sert kabuklu değildi. Bazı fosil bulguları, erken dinozorlarda yumuşak kabuklu yumurtaların da bulunduğunu gösteriyor. Ancak sanılanın aksine, dinozorların hepsi dev boyutlu değildi; birçok tür oldukça küçüktü. Örneğin Epidexipteryx hui oldukça küçük bir dinozordu; bilinen örneğin iskelet uzunluğu yaklaşık 25 cm’dir.
Dinozorlar ilk ortaya çıktıklarında ortamlarındaki baskın grup değillerdi; karasal habitatlarda çeşitli terapsidler ve diapsid sürüngenler yaşıyordu. Dinozorlarla aynı ekosistemleri paylaşan önemli gruplardan biri, biraz önce bahsettiğimiz pseudosuchianlardı. Trias’ın sonlarında gerçekleşen kitlesel yok oluşta pseudosuchianların çoğunun ve diğer bazı karasal omurgalı gruplarının ortadan kalkması, dinozorların Erken Jura’da çeşitlenerek karasal ekosistemlerde daha baskın hâle gelmesine katkıda bulundu.
Geç Trias boyunca dinozorlar Pangea’nın farklı bölgelerine yayıldı; Jura’nın başlarında ise coğrafi dağılımları daha da genişledi. Geç Trias dinozor faunasında özellikle teropodlar ve sauropodomorflar öne çıkıyordu. Trias’ın sonlarında potansiyel bir besin kaynağı olan açık tohumlu bitkilerin çeşitlenerek artmasıyla, otobur dinozorlar özellikle kozalaklı bitkilerden oluşan bu kaynağı sindirmeye yarayan yeni adaptasyonlar geliştirdi.
İlk sauropodomorf dinozorlar (Sauropodomorpha) yaklaşık 233–231 myö ortaya çıktı. Başlangıçta küçük yapılı olan bu grubun bazı soylarında zamanla vücut büyüklüğü ve boyun uzunluğu arttı. Daha sonra evrimleşen sauropodlar, gezegenimizde yaşamış en büyük kara hayvanları arasındaydı. Sauropodomorfların diş ve beslenme özellikleri oldukça çeşitlilik gösteriyordu. Özellikle sauropodlarda besinler ağızda çok az işleniyordu; bitkisel materyalin parçalanmasında sindirim sistemi önemli rol oynuyordu. Bazı sauropod fosilleriyle birlikte mide taşları (gastrolit) bulunmuş olsa da bunların modern kuşlardaki gibi besinleri öğüten bir “mide değirmeni” oluşturduğu görüşü desteklenmemektedir.
Sauropodlarda dişler yaşam boyunca yenileniyordu ve bazı gruplarda diş değişimi oldukça hızlıydı. Diş değişim süresi Nigersaurus’ta yaklaşık 14 gün, Diplodocus’ta 35 gün ve Camarasaurus’ta 62 gün olarak hesaplanmıştır. Bu farklılıkların, grupların farklı beslenme stratejileriyle ilişkili olduğu düşünülmektedir.
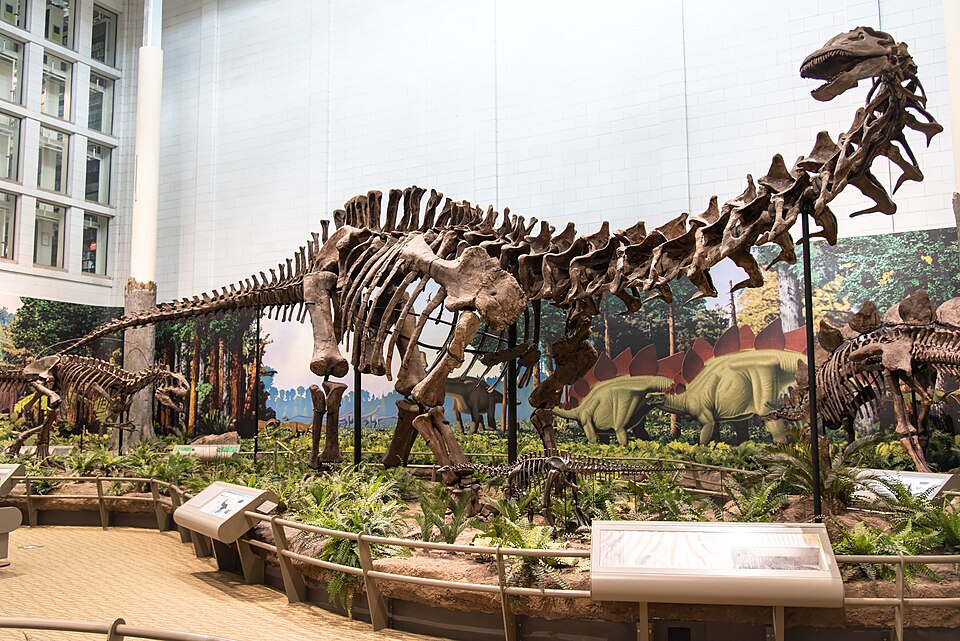
Resim: Sauropod dinozorlardan Apatosaurus louisae. Carnegie Doğa Tarihi Müzesi, ABD.
Geç Kretase’de dinozor faunaları coğrafi bölgelere göre genel olarak farklılık gösteriyordu:
1. Kuzey Amerika ve Asya’nın kuzey kesimlerinde: Tyrannosaurus rex’in de dâhil olduğu tyrannosauridler ve Maniraptora kladına ait çeşitli küçük theropodlar.
2. Gondvana’dan ayrılan güney kara kütlelerinde: abelisauridler ve titanosaurlar.
3. Avrupa takımadalarında: dromaeosauridler, rhabdodontidler, nodosaurid ankylosaurlar, titanosaurlar ve özellikle Kretase’nin sonlarına doğru hadrosauroidler.
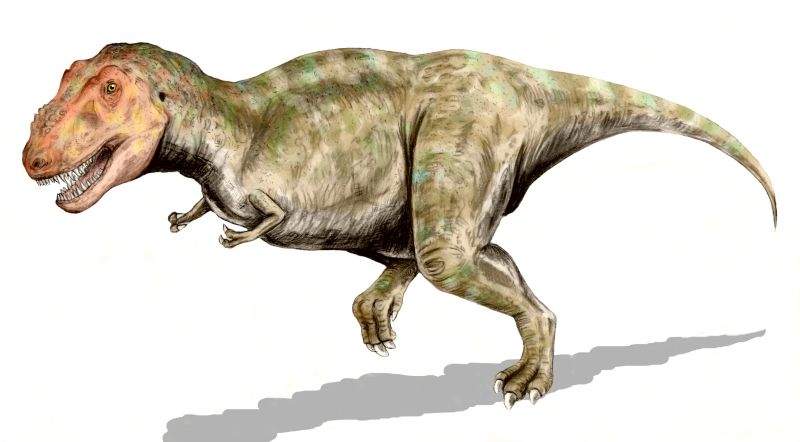
Resim: Geç Kretase Döneminin en büyük etobur dinozorlarından Tyrannosaurus rex
Fosil kayıtlarındaki ilk uçan sürüngenler olan pterosaurların görülmesi yaklaşık 228 milyon yıl öncesine denk gelir. Popüler medyada çoğu zaman hatalı bir şekilde uçan dinozorlar olarak tanıtılan pterosaurların kökeni henüz tam olarak aydınlatılmamıştır; ama bilinen bir şey varsa, o da dinozor olmadıklarıdır. Kanatları, ön uzuvlardan arka uzuvlara doğru uzanan bir zardan oluşuyordu; kanadın dış bölümünü oldukça uzamış dördüncü parmak destekliyordu. Erken pterosaurların çoğunda uzun kuyruklar ve dişli çeneler bulunuyordu. Daha sonra ortaya çıkan pterodaktiloidlerde kuyruk büyük ölçüde kısaldı; bazı soylar dişlerini tamamen kaybederken bazıları dişlerini korudu. Pterosaurların vücutlarının en azından bir bölümünü piknofiber adı verilen kıl benzeri filamentlerin kapladığı bilinmektedir.
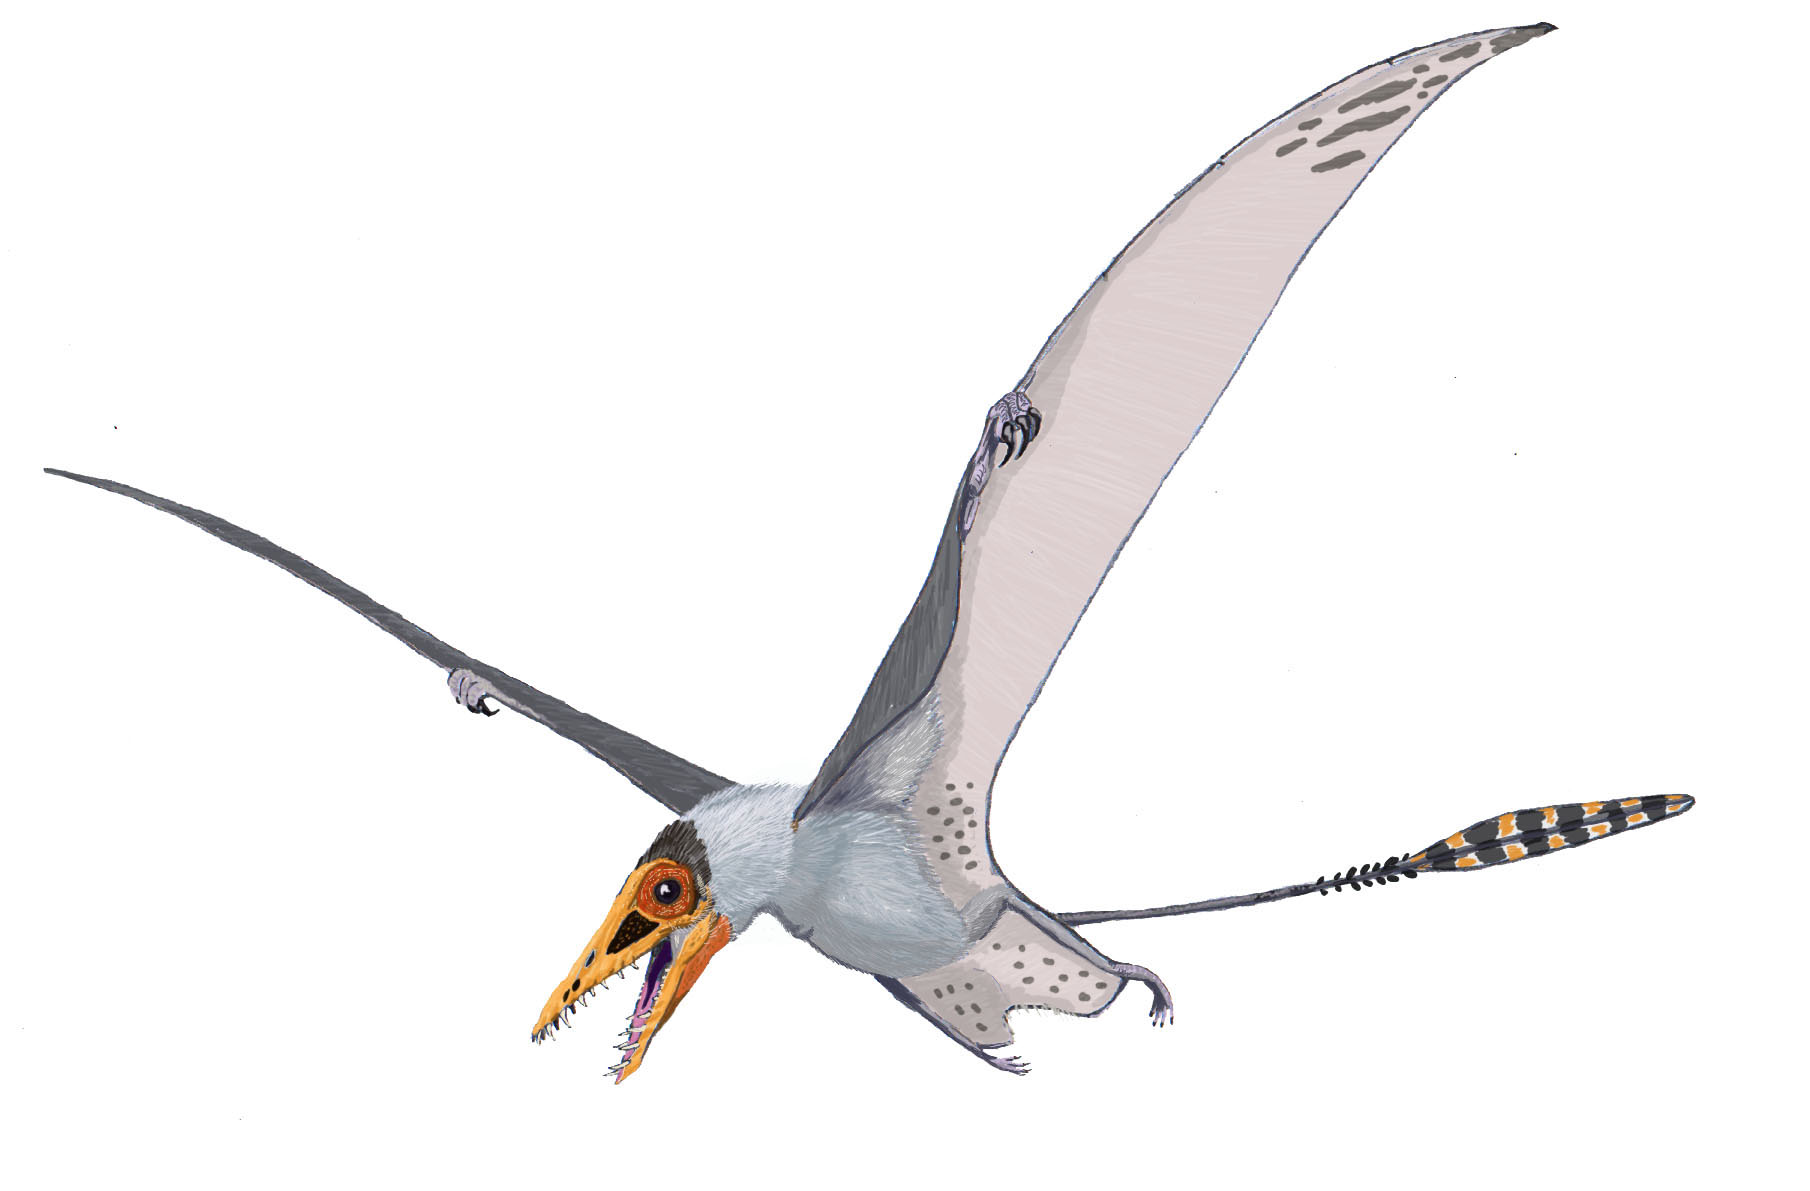
Resim: Geç Jura Döneminde yaşamış bir pterosaur olan Sordes pilosus
Jura Döneminin sonlarında, yaklaşık 160 myö, theropod dinozorların kuşlara uzanan soy hattının ilk üyeleri (avialanlar) görülmeye başlandı. Bu hayvanlar, dinozor atalarından miras kalan dişlere ve uzun, kemikli kuyruklara sahipti. Fosil kayıtları, dinozorlarla kuşların tüyler, boşluklu ve hafif kemikler, mide taşları, pullar, pençe yapıları, solunum sistemleri, yuva yapımı ve kuluçka davranışları gibi birçok ortak özelliğini ortaya koymaktadır. Kuşlar, yaklaşık 66 myö gerçekleşen Kretase–Paleojen Yok Oluşundan sağ çıkmış ve dinozorların günümüze ulaşan tek soy hattı olmuştur.
Modern kuşlarda hem pullar hem de telekler bulunur. Tüyler ve tüy benzeri yapılar birçok dinozor grubunda görülürken, pterosaurlarda piknofiber denilen benzer örtü yapıları bulunur. Dinozor tüyleriyle pterosaur piknofiberlerinin ortak bir evrimsel kökene sahip olup olmadığı ise hâlen araştırılmaktadır. Bkz. Yumurtasıyla bulunan dişi pterozor fosili
Yaklaşık 150 myö yaşamış olan Archaeopteryx, dinozorlardan kuşlara uzanan evrimsel sürecin en önemli fosil örneklerinden biridir. Tüylerin zor fosilleşmesi, fosil kayıtlarındaki tüylü dinozorların görece azlığını açıklayabilir. 2015 itibarıyla yaklaşık 40 dinozor türünde tüy veya tüy benzeri yapıların fosil kanıtları tanımlanmıştı; bunlar arasında Anchiornis huxleyi, Epidexipteryx hui, Microraptor zhaoianus, Sinosauropteryx prima, Changyuraptor yangi, Velociraptor mongoliensis ve Protarchaeopteryx robusta bulunur. 2010 yılında yapılan pigment çalışmalarıyla Anchiornis huxleyi’nin tüy renkleri ve deseni de büyük ölçüde belirlenmiştir. Bkz. Dinozorların kuşlara evrimi.
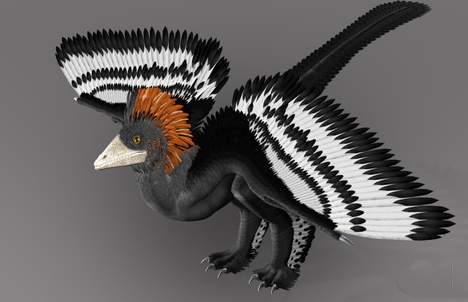
Resim: Siyah-beyaz kanatları ve kızıl kafa tüyleriyle Anchiornis huxleyi
Trias’ın sonlarında ortaya çıkan memeli biçimlilerin yanı sıra, bu yazıda bahsetmediğimiz daha başka birçok hayvan grubu da Mezozoik Zamanda evrimleşmiştir.
Bu yazım, Ateist Dergi’nin Kasım 2014 tarihli 10. sayısında yayımlanmıştır.
Kaynaklar:
- Smithsonian National Museum of Natural History; Extinction and Recovery.
- AAG Center for Global Geography Education; The Effects of Pangea Breakup.
- Science Direct; Recovery of the Triassic land flora from the end-Permian life crisis.
- C. Scotese Paleomar Project; Climate History.
- Science Direct; Bromalites from the Middle Triassic of Poland and the rise of the Mesozoic Marine Revolution.
- Wikimedia Commons.
- Wikipedia; Therapsida.
- Live Science; Triassic Period Facts: Climate, Animals & Plants.
- PLOS One; Evolution of High Tooth Replacement Rates in Sauropod Dinosaurs.
- Britannica; Evolution: Plant timeline.
- Sciences 360; Similarities between Dinosaurs and Birds.
- Science; Plumage color patterns of an extinct dinosaur.
- Journal of submicroscopic cytology and pathology; Beta-keratin localization in developing alligator scales and feathers in relation to the development and evolution of feathers.