İnsanın evrimi
(Son güncelleme: 2026)
Bilimin insanlara ait fosil kayıtlarını inceleyen dalına paleoantropoloji denir. Paleoantropoloji, paleontoloji (eski canlı türlerini inceleyen bilim dalı) ile antropolojinin (insanları inceleyen bilim dalı) kesişim noktasıdır. Canlıların genom haritalarının çıkarılmaya başlanmasıyla, paleoantropolojiye en büyük destek de kuşkusuz genetik biliminden gelir. Canlıların isimlendirilerek sınıflandırılması ile ilgilenen bilim dalı taksonomidir ve yeni elde edilen verilerle zaman zaman değişebilir. Güncel taksonomiye göre insanın evrimini incelerken kullandığımız bazı terimleri aşağıda bulacaksınız. Bu yazının sonunda artık “İnsan maymundan mı geldi?” cümlesinden kurtulacağımızı umuyorum, çünkü konunun kavranması ve evrim sürecinin anlaşılması halinde bu sorunun anlamsızlığı ortaya çıkacaktır.
Biyolojide her canlı türü, büyük harfle yazılan bir cins ismi (örn: Australopithecus, Homo) ve sonrasında gelen bir belirleyici isimle tanımlanır (örn: africanus, erectus). Böylece bir tür ismi ortaya çıkar (örn: Homo erectus) ve kısa haliyle kullanılabilir (örn: H. erectus).
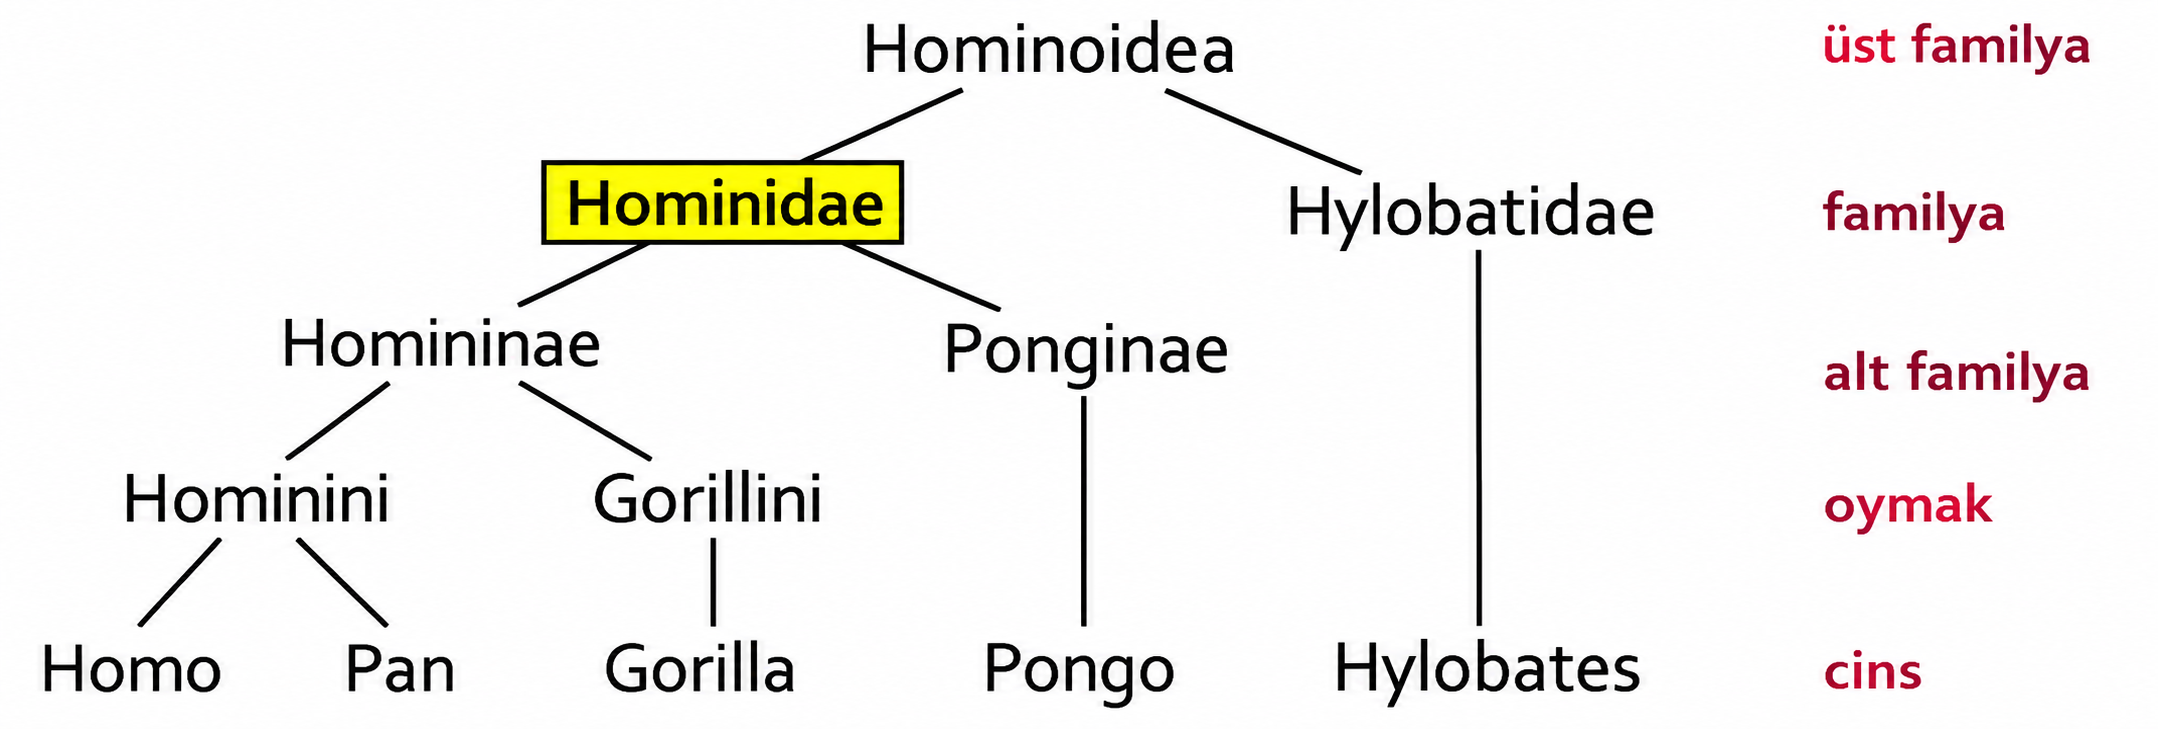
- Hominoidea [ÜST FAMİLYA] : Kuyruksuz maymunlar veya insansı maymunlar
- Hominidae [FAMİLYA] : Hominidler veya büyük insansı maymunlar (orangutan, goril, şempanze ve insan soyları)
- Homininae [ALT FAMİLYA] : Hominineler (goril, şempanze ve insan soyları)
- Hominini [OYMAK] : Homininler (şempanze ve insan soyları)
- Hominina [ALT OYMAK] : Hominanlar (insan–şempanze ortak atasından ayrıldıktan sonraki insan soy hattı; Sahelanthropus, Orrorin, Ardipithecus, Australopithecus, Kenyanthropus, Paranthropus ve Homo; bazı erken cinslerin konumu ve geçerliliği tartışmalıdır.)
- Homo [CİNS] : İnsanlar (H. habilis, H. rudolfensis, H. ergaster, H. erectus, H. antecessor, H. heidelbergensis, H. neanderthalensis, H. floresiensis, H. naledi, H. luzonensis ve H. sapiens; ayrıca taksonomik statüsü tartışmalı türler ve genel kabul görmüş bir tür adı bulunmayan Denisova insanı.)

Bu yazıda hominanlar ele alınacaktır. DNA’mız, yaşayan en yakın akrabalarımız olan şempanze ve bonoboların DNA’sıyla büyük ölçüde benzerdir. (bkz. Genomlarımızın Işığında Primat Kökenimiz) Genetik ve fosil verilerine göre, insan ve şempanze soylarının son ortak atası yaklaşık 6–8 milyon yıl önce yaşamıştır. Bu ortak atadan ayrılan soylar, daha sonraki evrimsel süreçte şempanze ve bonoboları kapsayan Pan cinsi ile insanları kapsayan Homo cinsinin ortaya çıktığı evrimsel hatlara ayrılmıştır. Peki bu ayrılmadan sonra bize ne oldu? Hominan soyu, doğrudan Homo sapiens‘e dönüşmedi; birçok hominanın oluşmasına kaynaklık etti. Bu yazıda başlıca hominanları anlatacağım; ancak sınıflandırma yeni verilerin ışığında değişmektedir, örneğin bir zamanlar hominan olarak kabul edilen bazı türler, son fosil bulgularıyla artık farklı bir sınıflandırmada ele alınmaktadır. (Örneğin; Ramapithecus’un aslında orangutanlarla yakın akraba olduğu anlaşılmış ve dolayısıyla hominan sınıflandırmasından çıkarılmıştır; Lewin 1987.). Fosiller dışında pek çok mağara, alet, ayak izi vb kayıtlar olmasına rağmen bu yazıda onlardan çok fazla bahsetmeyeceğim.
Hominan türleri
1859’da Darwin’in “Türlerin Kökeni” kitabının yayımlanmasıyla fark edilmeye başlanan, insanların Afrikalı maymunlarla akraba olduğu fikri, 1924 yılında Afrika’da bulunan ilk fosillerle sağlam bir zemine oturmaya başlamıştır. Bu fosil, Raymond Dart tarafından tanımlanan yaklaşık 2,8 milyon yıllık bir Australopithecus africanus fosiliydi (Taung Child). Bundan daha önce bulunan fosiller de bu tarihlerden sonra daha belirgin sınıflandırmalara sokulabildi. Ancak fosil kayıtları doğası gereği eksiktir ve insanın evrimsel geçmişine ilişkin henüz keşfedilmemiş fosiller bulunmaktadır. Dahası şu an için bilinen türler bile o kadar çeşitlidir ki, kimi zaman uzmanlar bile bunların nasıl sınıflandırılması gerektiği konusunda fikir ayrılığına düşmektedir. Yine de kaba hatlarıyla insan ve şempanze soylarının son ortak atasından sonraki insan evrim hattı yeterince belirgindir. Geçtiğimiz yüzyılda birçok yeni fosilin bulunmasıyla insanın evrimsel geçmişi daha da aydınlanmış ve çok sayıda hominan türü tanımlanmıştır.
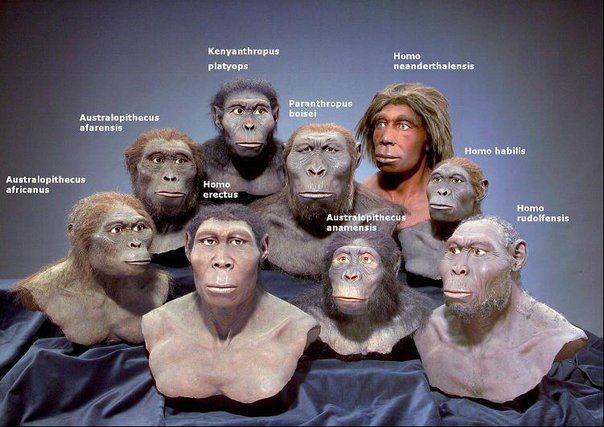
Hominan türleri, fosil kayıtları ve DNA analizlerinden çıkan tarihsel özelliklerine ek olarak, iki ayak üzerinde yürüme (bipedalizm), artan beyin hacmi, küçülen diş yapısı, iskelet yapısı, alet kullanımı, kılsızlaşma, avlanma, ateşin kullanımı ve ilerleyen süreçte dillerin gelişimi, sanat, kültür ve medeniyete olan yaklaşımları gibi birçok kriterde değerlendirilebilir. Ancak bu yazıda onları biraz daha özet olarak, yalnızca en temel ve önemli farklılıkları vurgulayarak anlatacağım. Beyin büyüklüğü ve kafatası hacmindeki artışın yanı sıra iki ayak üstünde yürümeye başlamamız, belki de maymunlarla aramızdaki en büyük farktır; çünkü bu sayede eller serbest kalmış ve alet kullanımına müsait hale gelmiştir. Australopithecus’un iki ayak üzerinde yürüdüğü, kemik/iskelet şekline ve de fosilleşmiş ayak izlerine bakılarak anlaşılmıştır. Australopithecus türlerinden birinin veya bunlara yakın bir soyun Homo cinsinin atası olduğu düşünülmektedir. Australopithecus türleri, daha sonra ortaya çıkan Paranthropus soyuyla da yakın evrimsel ilişki içindedir.
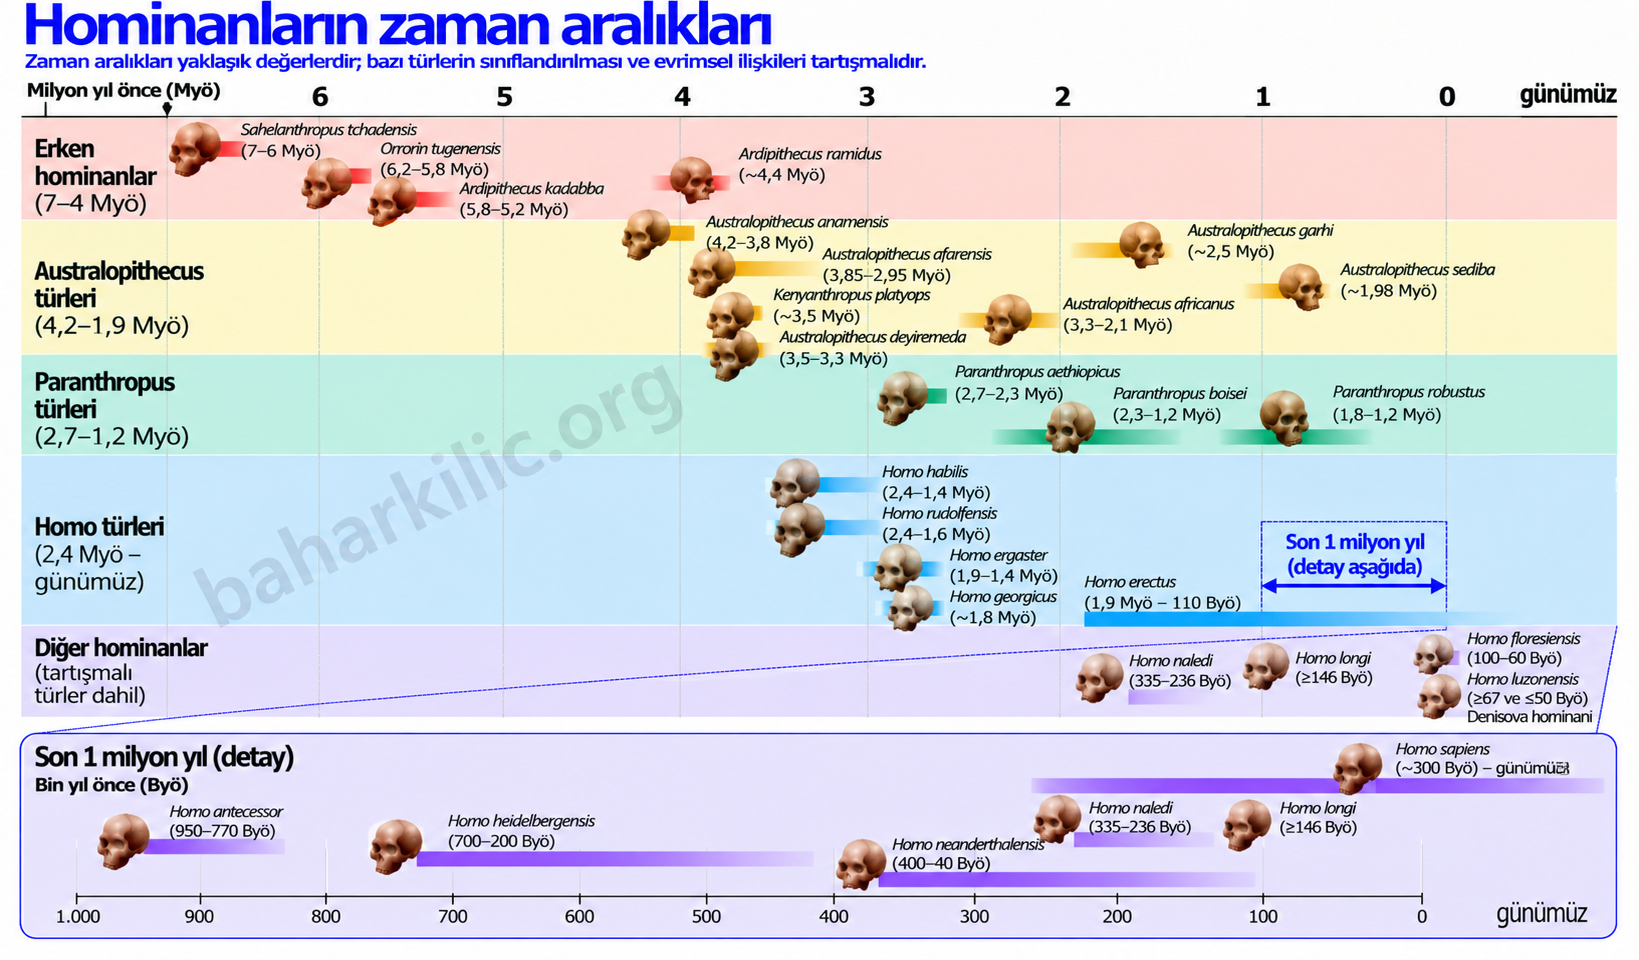
Buradan itibaren anlatılacak hominanlar, yaşadıkları döneme göre en eskiden en yeniye doğru sıralanmıştır.
➜ işaretine tıklayarak ilgili hominanın açıklamasına ulaşabilirsiniz.
- Sahelanthropus tchadensis ➜
- Orrorin tugenensis ➜
- Ardipithecus kadabba ➜
- Ardipithecus ramidus ➜
- Australopithecus anamensis ➜
- Australopithecus afarensis ➜
- Kenyanthropus platyops ➜
- Australopithecus deyiremeda ➜
- Australopithecus africanus ➜
- Australopithecus garhi ➜
- Australopithecus sediba ➜
- Paranthropus aethiopicus ➜
- Paranthropus robustus ➜
- Paranthropus boisei ➜
- Homo gautengensis ➜
- Homo rudolfensis ➜
- Homo habilis ➜
- Homo ergaster ➜
- Homo georgicus ➜
- Homo erectus ➜
- Homo cepranensis ve Homo antecessor ➜
- Homo heidelbergensis ➜
- Homo naledi ➜
- Homo neanderthalensis ➜
- Homo floresiensis (Flores İnsanı veya “Hobbit”) ➜
- Homo luzonensis ➜
- Denisova hominanı (Denisovalılar) ➜
- Homo longi (Ejderha adam) ➜
- Homo sapiens (Modern insan) ➜
Sahelanthropus tchadensis:
Toumaï adı verilen kafatası fosili, 2001 yılında Çad’ın Djurab Çölünde bulundu ve Sahelanthropus tchadensis olarak tanımlandı (Brunet vd., 2002; Wood, 2002).
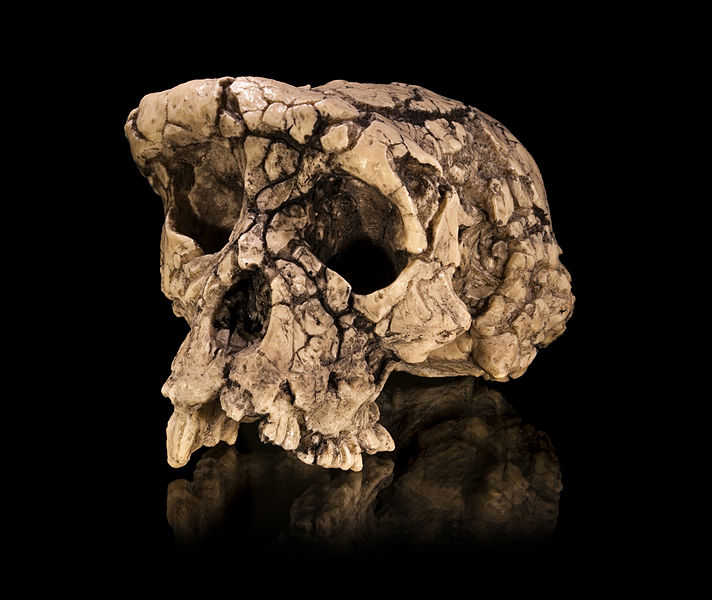
Resim: Toumai (S. tchadensis) kafatası fosili
- Beyin hacmi yaklaşık 360–370 cm³
- Yaklaşık 6–7 milyon yıl önce yaşamıştır ve bilinen en eski olası hominanlardan biridir. Küçük köpek dişleri ve kafatasındaki bazı özellikler hominanlarla ilişkilendirilmiştir. Ayrıca uyluk kemiği üzerinde yapılan çalışmalar iki ayaklılığa ilişkin kanıtlar ortaya koyarken, ulna (dirsek kemiği) bulguları ağaç yaşamına da uyumlu olduğunu göstermektedir.
- Bununla birlikte insan ve şempanze soylarının ayrılma dönemine çok yakın yaşadığı için Sahelanthropus’un insan soyuna ait erken bir hominan mı yoksa başka bir insansı maymun soyuna mı ait olduğu konusunda tartışmalar bulunmaktadır.
Orrorin tugenensis:
Orrorin adı verilen cinse ait fosiller, 2000 yılında Kenya’nın Tugen Tepeleri’nde bulundu ve Orrorin tugenensis olarak tanımlandı (Senut vd., 2001).
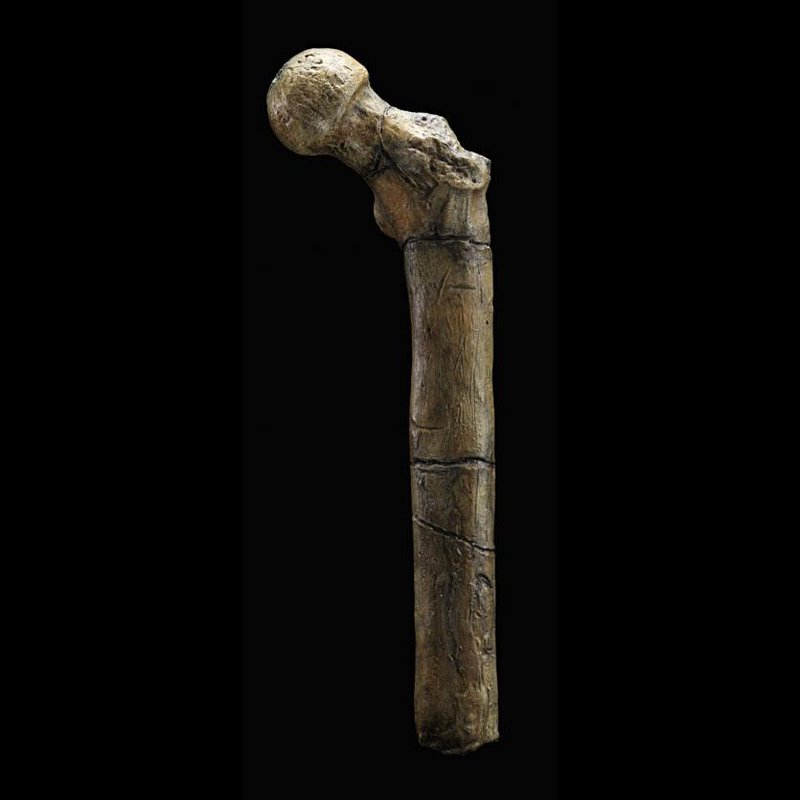
Resim: O. tugenensis’e ait BAR 1002’00 katalog numaralı uyluk kemiği fosili. Kemiğin anatomik özellikleri, Orrorin’in iki ayak üzerinde yürüyebildiğine ilişkin önemli kanıtlardan biridir.
- Kafatası bulunmadığı için beyin hacmi bilinmemektedir.
- Yaklaşık 6,2–5,8 milyon yıl önce yaşamıştır.
- O. tugenensis’e ait fosiller arasında alt çene parçaları, dişler, uyluk kemikleri, kol kemiği ve parmak kemikleri bulunmaktadır. Vücut büyüklüğünün yaklaşık bir dişi şempanze kadar olduğu ve ağırlığının 30–50 kg arasında olabileceği tahmin edilmektedir.
- Uyluk kemiklerinin yapısı iki ayak üzerinde yürüyebildiğine işaret ederken, uzun ve kıvrık parmak kemikleri ağaca tırmanmaya da uyumlu olduğunu göstermektedir.
- Azı dişleri görece küçük ve kalın minelidir; köpek dişleri ise maymunsu özellikler taşımaktadır.
- Fosillerin bulunduğu çevreye ilişkin veriler, O. tugenensis’in ormanlık ve ağaçlık alanların bulunduğu bir habitatta yaşadığını düşündürmektedir.
Ardipithecus kadabba:
Etiyopya’nın Afar bölgesindeki Orta Awash’ta bulunan fosiller, 2001 yılında Ardipithecus ramidus kadabba adıyla A. ramidus’un bir alt türü olarak tanımlandı. Daha sonra bulunan diş fosilleri ve bunların gösterdiği anatomik farklılıklar sonucunda 2004 yılında ayrı bir tür olan Ardipithecus kadabba olarak sınıflandırıldı (Haile-Selassie, 2001; Haile-Selassie vd., 2004).
- Beyin hacmi bilinmemektedir; türe ait bir kafatası bulunmamıştır.
- Yaklaşık 5,8–5,2 milyon yıl önce Etiyopya’da yaşamıştır.
- Fosil kayıtları sınırlıdır ve çoğunlukla dişler, çene parçaları ve az sayıdaki uzuv kemiğinden oluşmaktadır.
- Türe atfedilen bir ayak parmağı kemiğinin yapısı iki ayak üzerinde yürümeye işaret etmektedir; ancak bu kemiğin A. kadabba’ya ait olup olmadığı konusunda bazı belirsizlikler bulunmaktadır.
- Köpek dişleri A. ramidus’takilere göre daha ilkel özellikler taşır; diş yapısındaki bu farklılıklar A. kadabba’nın ayrı bir tür olarak sınıflandırılmasında önemli rol oynamıştır.
- İnsan ve şempanze soylarının ayrılmasına yakın bir dönemde yaşamış olması nedeniyle, erken hominanların evriminin anlaşılması açısından önemlidir.
Ardipithecus ramidus:
Ardi adı verilen kısmi iskelet fosili, 1994 yılında Etiyopya’nın Afar bölgesindeki Aramis’te bulundu ve Ardipithecus ramidus olarak tanımlandı (White vd., 1994; White vd., 2009).
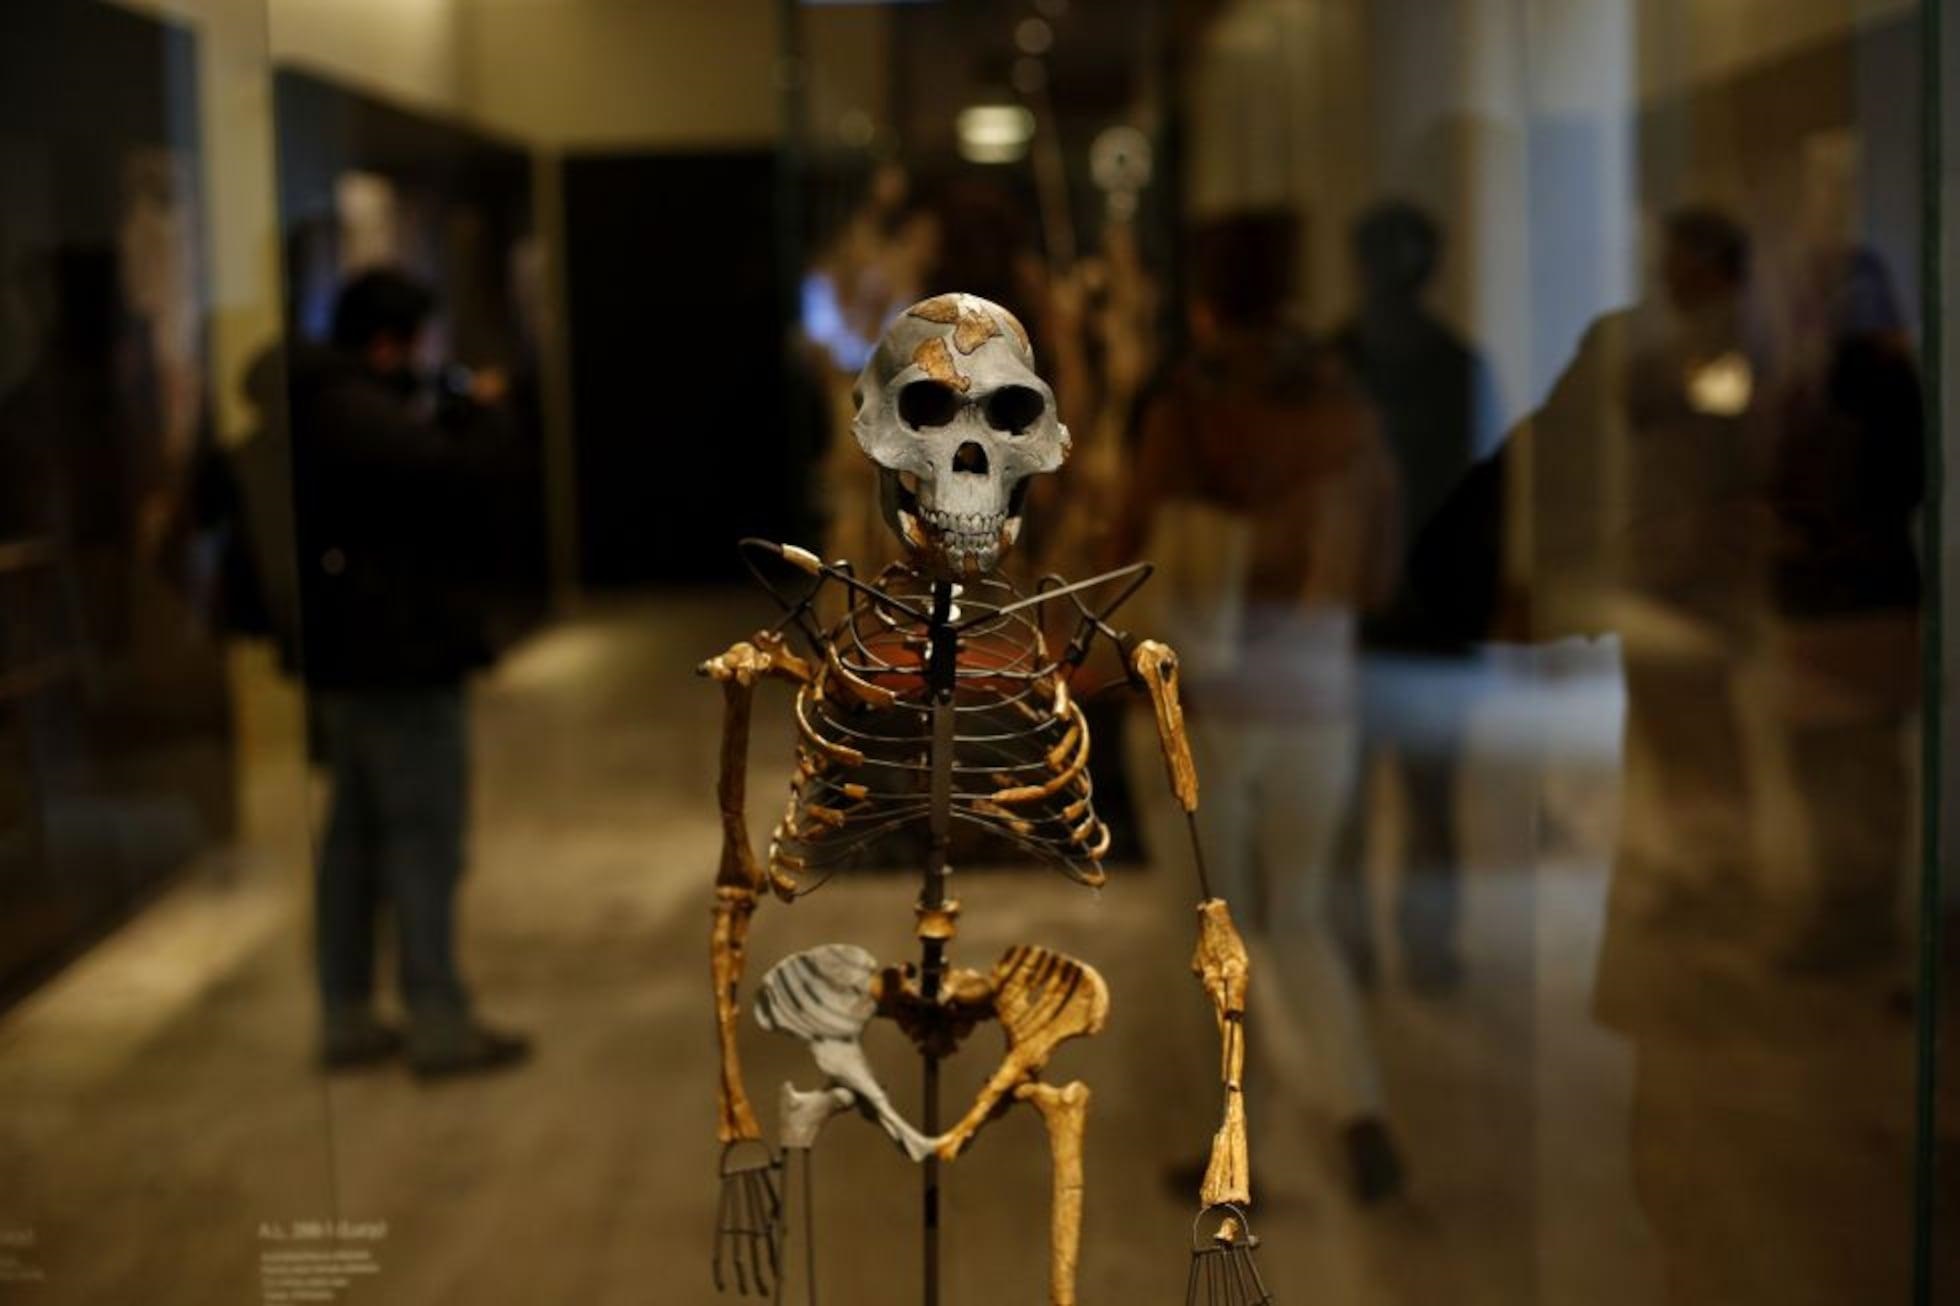
Resim: A. ramidus iskelet rekonstrüksiyonu, Etiyopya Ulusal Müzesi, Addis Ababa
- Beyin hacmi yaklaşık 300–350 cm³
- Aşağı yukarı 4,4 milyon yıl önce yaşamıştır.
- Ardi, dişi bir bireye ait kısmi bir iskelettir; kafatası ve dişlerin yanı sıra pelvis, el, kol, bacak ve ayak kemiklerinin parçalarını içerir. Yaklaşık 120 cm boyunda ve 50 kg ağırlığında olduğu tahmin edilmektedir.
- Pelvis yapısı yerde iki ayak üzerinde yürüyebildiğine işaret ederken, kavrayıcı ayak başparmağı ve diğer anatomik özellikleri ağaçlarda hareket etmeye de uyumlu olduğunu göstermektedir. Yürüyüş biçimi daha sonraki hominanlarınkinden farklıydı.
- Küçük köpek dişlerine sahiptir ve erkeklerle dişiler arasındaki köpek dişi büyüklüğü farkı azdır.
- A. ramidus’un yaşadığı çevrenin ağırlıklı olarak ormanlık olduğu düşünülmektedir; bu bulgu, iki ayaklılığın ormanlık ortamlarda da gelişmiş olabileceğini göstermektedir.
- İlk olarak Australopithecus ramidus adıyla tanımlanan tür, daha sonra Ardipithecus cinsine alınarak A. ramidus olarak yeniden adlandırılmıştır.
Australopithecus anamensis:
İlk fosil 1965 yılında Kenya’nın Kanapoi bölgesinde bulundu; 1994 yılında bulunan yeni fosillerin ardından tür Australopithecus anamensis olarak tanımlandı (Leakey vd., 1995).
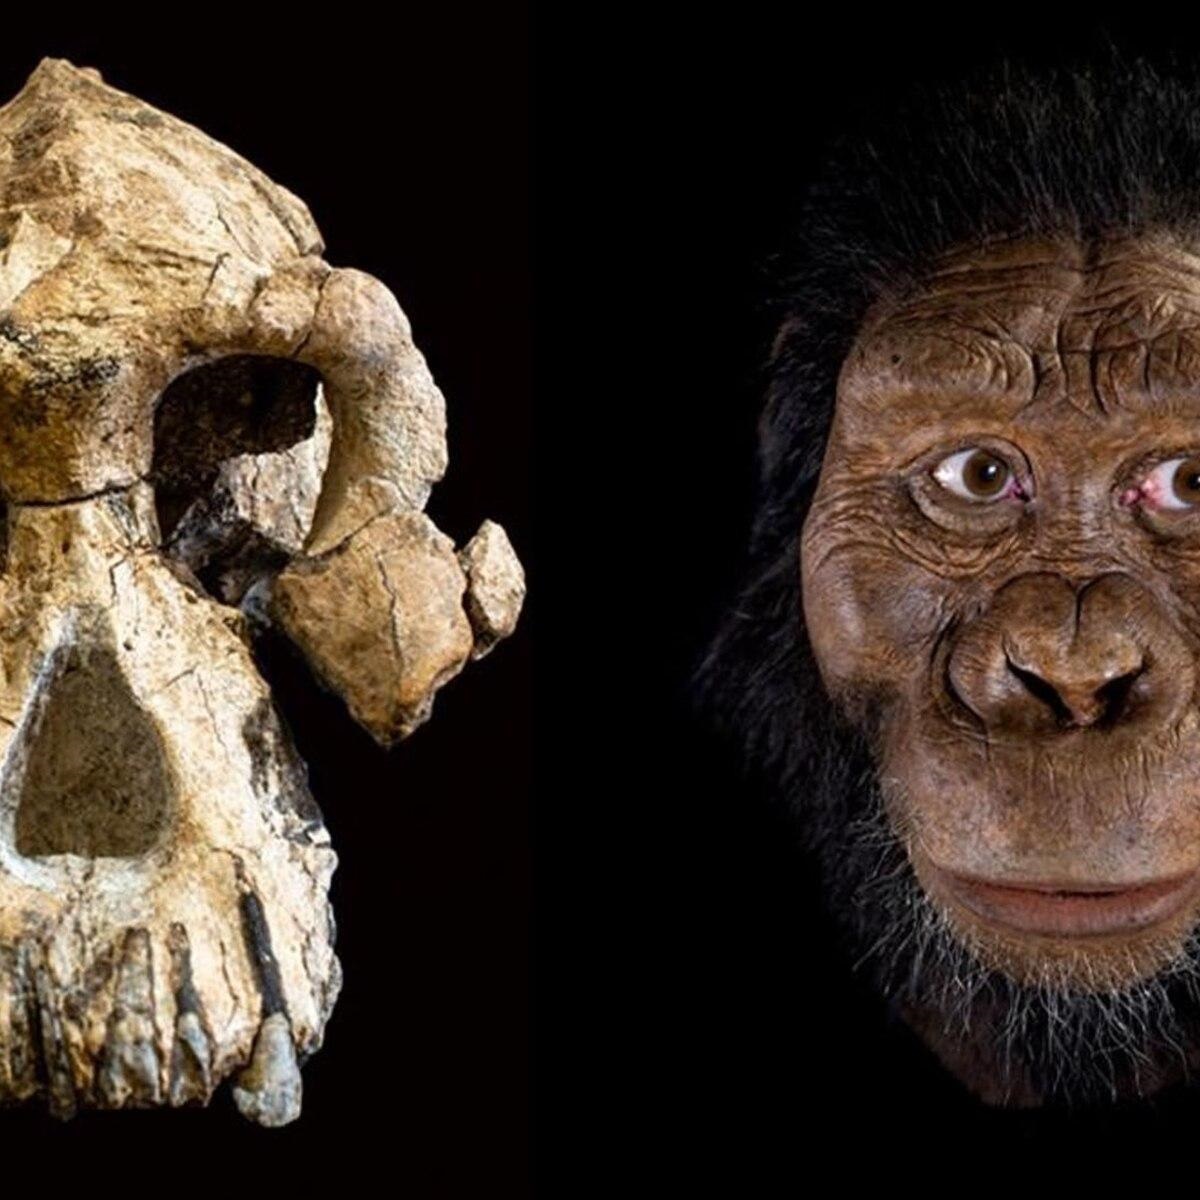
Resim: A. anamensis’e ait MRD-VP-1/1 kafatası fosili ve dijital rekonstrüksiyonu
- Beyin hacmi kesin olarak bilinmemektedir. 2016 yılında Etiyopya’da bulunan MRD-VP-1/1 kafatası, türün kafatası yapısının büyük bölümünün ilk kez belirlenmesini sağlamıştır.
- Yaklaşık 4,2–3,8 milyon yıl önce yaşamıştır.
- Fosilleri Kenya ve Etiyopya’da bulunmuştur; alt ve üst çene parçaları, dişler, kafatası ve uzuv kemikleri bilinmektedir. Vücut büyüklüğünün yaklaşık bir dişi şempanze kadar olduğu düşünülmektedir.
- Kaval kemiğinin (tibia) yapısı iki ayak üzerinde yürüdüğüne ilişkin güçlü kanıtlar sunarken, ön uzuvlarındaki bazı özellikler ağaçlara tırmanmaya da uyumlu olduğunu göstermektedir.
- Çenesi uzun ve güçlüdür; bazı diş ve çene özellikleri daha ilkel özellikleri korurken, kalın diş minesi daha sonraki Australopithecus türleriyle benzerlik göstermektedir.
- Ormanlık alanlarla daha açık alanların bir arada bulunduğu çeşitli habitatlarda yaşamıştır.
- Uzun süre A. afarensis’in doğrudan atası olduğu düşünülmüş, ancak MRD-VP-1/1 kafatasının keşfi A. anamensis ile A. afarensis’in en az 100.000 yıl boyunca aynı dönemde yaşamış olabileceğini göstermiştir.
Australopithecus afarensis:
Lucy (AL 288-1) adı verilen kısmi iskelet fosili, 1974 yılında Etiyopya’nın Hadar bölgesinde bulundu. Yaklaşık 3,18 milyon yıl öncesine tarihlenen Lucy, Australopithecus afarensis türüne aittir. İsmi, keşfedildiği gece araştırma ekibinin dinlediği The Beatles’ın “Lucy in the Sky with Diamonds” şarkısından gelmektedir (Johanson ve Edey, 1981). Bir diğer örnek olan ve Selam (DIK-1-1) veya Dikika Çocuğu adı verilen çocuk fosili ise, 2000 yılında Etiyopya’nın Dikika bölgesinde bulundu.
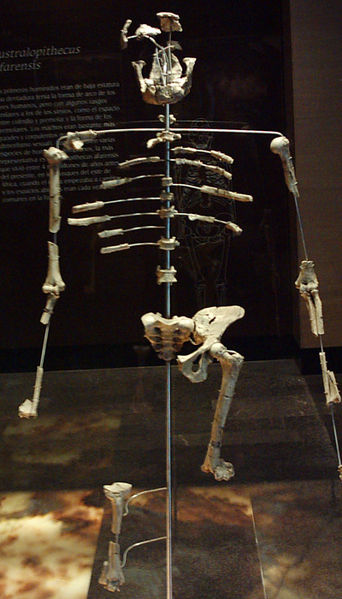
Resim: Lucy (AL 288-1; A. afarensis) iskelet replikası, Amerikan Doğa Tarihi Müzesi, New York
- Beyin hacmi yaklaşık 385–550 cm³ olup, türün ortalaması yaklaşık 430 cm³ olarak tahmin edilmektedir.
- Yaklaşık 3,85–2,95 milyon yıl önce yaşamıştır. Fosilleri Etiyopya, Kenya ve Tanzanya’da bulunmuştur.
- Lucy, yetişkin bir dişiye ait yaklaşık %40 oranında korunmuş kısmi bir iskelettir. Yaklaşık 105 cm boyunda ve 28–29 kg ağırlığında olduğu düşünülmektedir. Türün iki eşeyi arasında belirgin bir vücut büyüklüğü farkı görülür; dişilerin ortalama boyu yaklaşık 105 cm, erkeklerin ise 151 cm olduğu tahmin edilmektedir.
- Dikika Çocuğu adı verilen ve yaklaşık 3,3 milyon yıl öncesine tarihlenen çocuk fosili, 2000 yılında Etiyopya’nın Dikika bölgesinde bulundu. Öldüğünde yaklaşık 2,5–3 yaşında olduğu tahmin edilen Dikika Çocuğu, A. afarensis’in çocukluk dönemindeki gelişimi hakkında önemli bilgiler sağlamıştır. Ayak ve alt uzuvları iki ayaklılığa uyum gösterirken, omuz ve kürek kemiğinin bazı özellikleri ağaçlara tırmanma yeteneğinin de korunduğuna işaret etmektedir.
- Pelvis, uyluk ve diz yapısı A. afarensis’in düzenli olarak iki ayak üzerinde yürüdüğünü göstermektedir. Bununla birlikte uzun, güçlü kolları ve kıvrık parmakları, ağaçlara tırmanma yeteneğini de koruduğuna işaret etmektedir. Yürüyüşünün modern insanınkiyle tamamen aynı olup olmadığı ise kesin değildir.
- Kafatası ve yüz yapısında insansı maymunlara benzeyen özellikler bulunurken, köpek dişleri yaşayan insansı maymunlarınkinden daha küçüktür.
- A. afarensis, ormanlık alanlardan açık otlaklara kadar farklı çevrelerde yaşayabilmiştir.
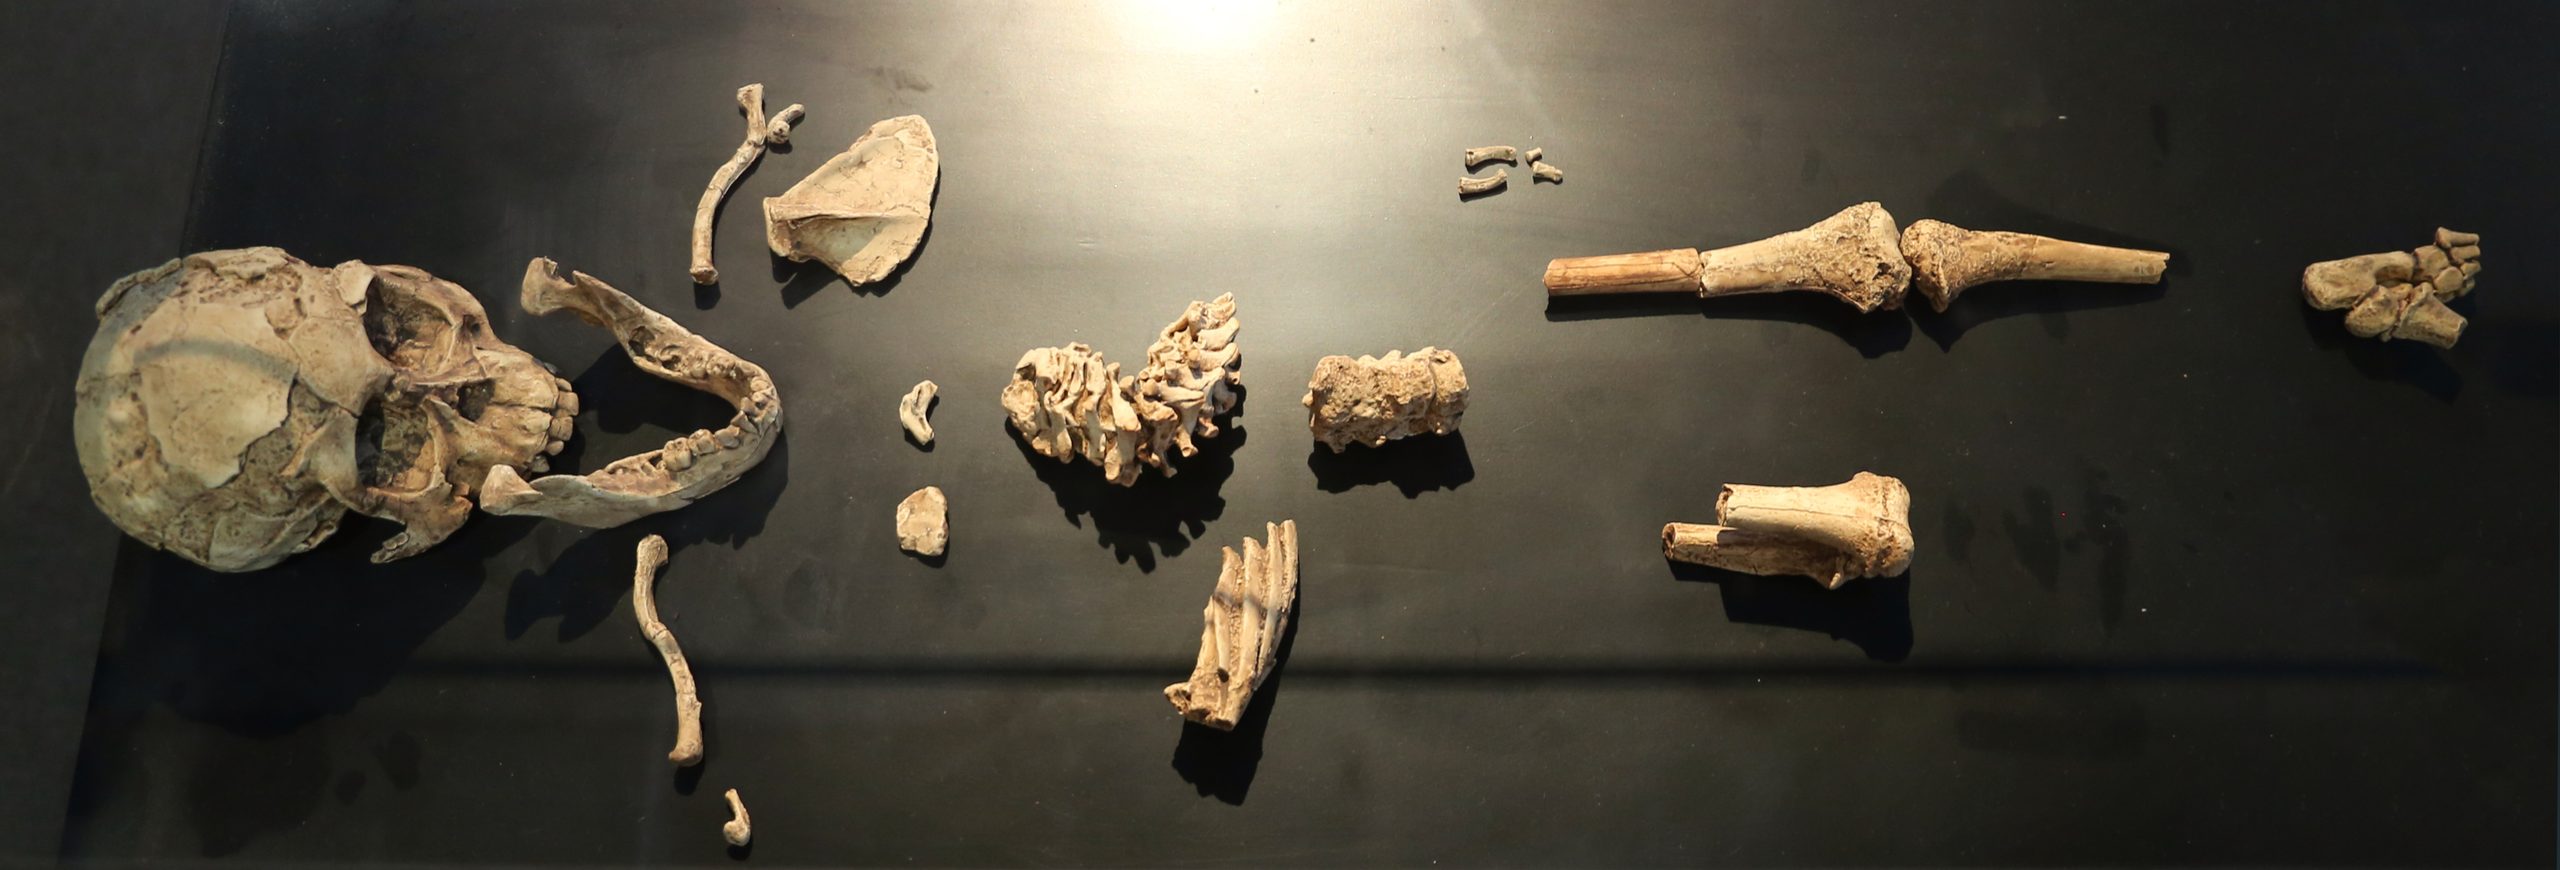
Resim: Selam (Dikika Çocuğu, DIK-1-1; A. afarensis) fosil kalıntıları, Etiyopya Ulusal Müzesi, Addis Ababa
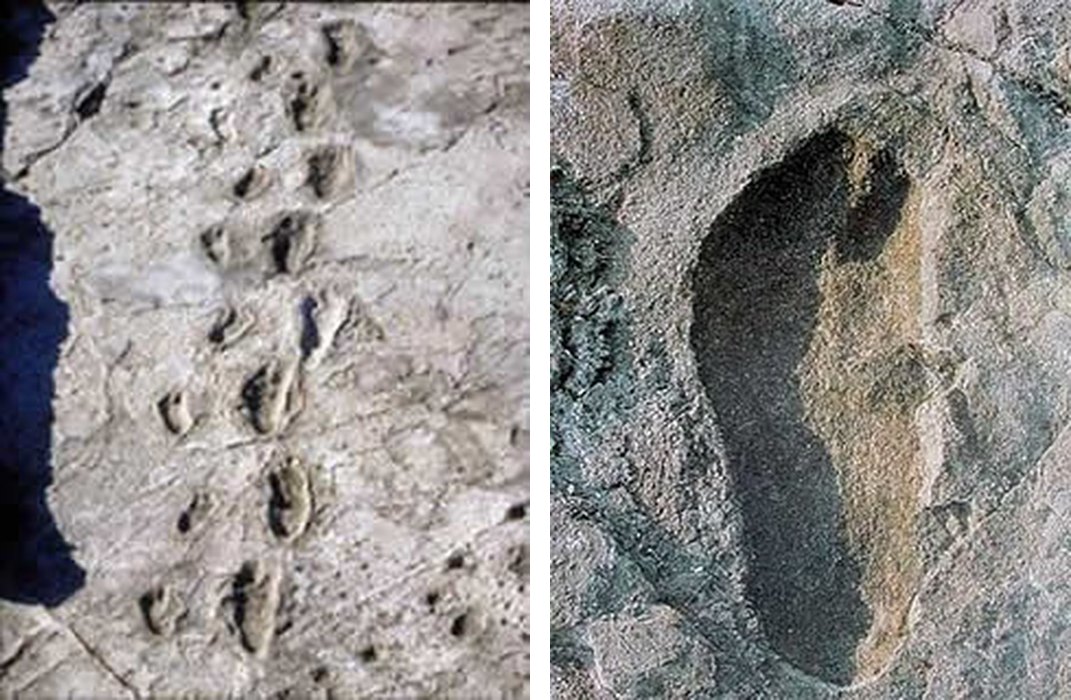
Resim: Tanzanya’nın Laetoli bölgesinde bulunan yaklaşık 3,66 milyon yıllık ayak izleri genellikle A. afarensis ile ilişkilendirilir ve bu türün iki ayak üzerinde yürüdüğüne ilişkin önemli kanıtlardan biridir.
Kenyanthropus platyops:
KNM-WT 40000 adı verilen kısmi kafatası fosili, 1999 yılında Kenya’nın Batı Turkana bölgesinde Justus Erus tarafından, Meave Leakey liderliğindeki araştırma ekibinin çalışmaları sırasında bulundu ve Kenyanthropus platyops olarak tanımlandı (Leakey vd., 2001).
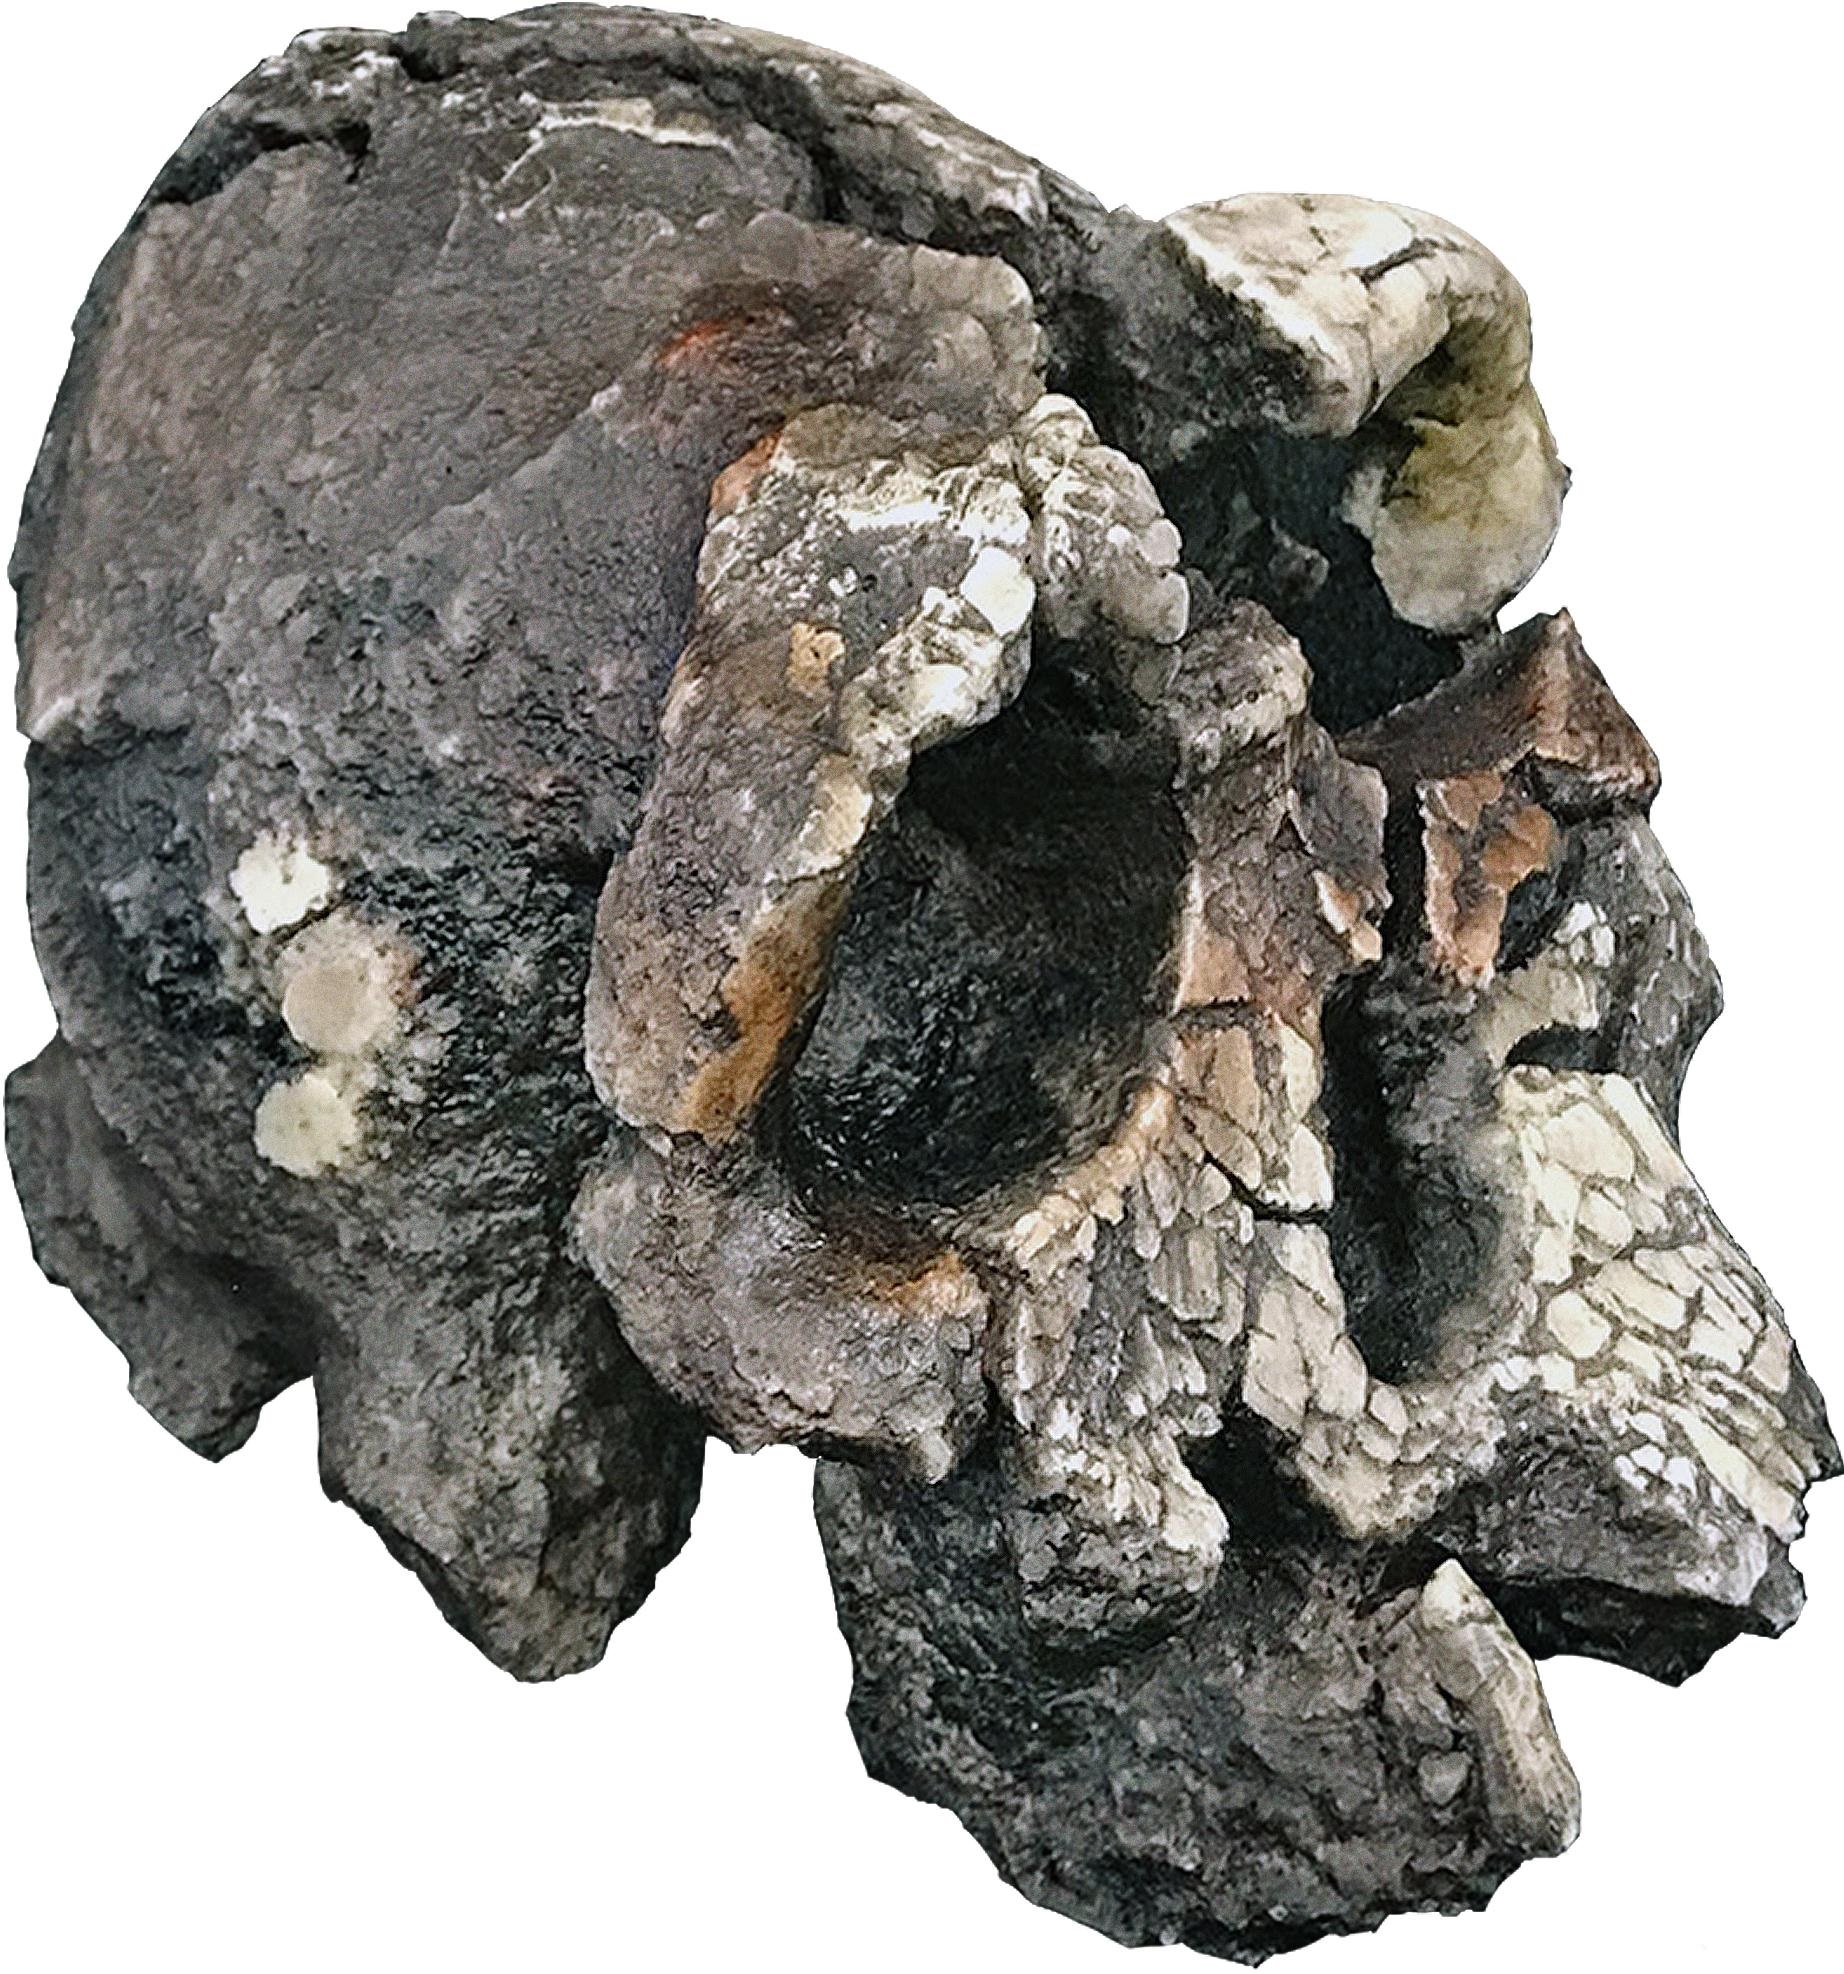
Resim: K. platyops’a ait KNM-WT 40000 kafatası
- Beyin hacmi kesin olarak bilinmemektedir; kafatası, küçük bir beyne sahip olduğuna işaret etmektedir.
- Yaklaşık 3,5 milyon yıl önce yaşamıştır ve A. afarensis ile aynı dönemde Doğu Afrika’da bulunmuştur.
- Tür esas olarak KNM-WT 40000 kafatasıyla bilinmektedir. Fosil önemli ölçüde ezilmiş ve biçim değiştirmiş olduğundan anatomik özelliklerinin yorumlanması güçtür.
- İki ayak üzerinde yürüdüğü düşünülmektedir; ancak türe kesin olarak atfedilebilen uzuv kemikleri bulunmadığından hareket biçimine ilişkin doğrudan kanıtlar sınırlıdır.
- Yüzü görece geniş ve yassı, elmacık kemikleri yüksek; azı dişleri küçük ve kalın minelidir. Bu özelliklerin oluşturduğu farklı kombinasyon, fosilin ayrı bir cins ve tür olarak tanımlanmasında etkili olmuştur.
- K. platyops’un ayrı bir tür ve cins olup olmadığı tartışmalıdır. Bazı araştırmacılar kafatasındaki biçim bozulmasının ayırt edici özellikleri etkilediğini ve fosilin A. afarensis kapsamında değerlendirilebileceğini düşünmektedir.
Australopithecus deyiremeda:
Etiyopya’nın Afar bölgesindeki Woranso-Mille’de bulunan çene ve diş fosilleri, 2015 yılında Australopithecus deyiremeda adıyla yeni bir tür olarak tanımlandı. Türün tip örneği BRT-VP-3/1 adı verilen kısmi üst çenedir (Haile-Selassie vd., 2015).
- Beyin hacmi bilinmemektedir; türe ait bir kafatası bulunmamıştır.
- Yaklaşık 3,5–3,3 milyon yıl önce Etiyopya’da yaşamış ve A. afarensis ile aynı dönemde Afar bölgesinde bulunmuştur.
- Diş ve çene yapısındaki özellikleri A. afarensis’ten farklıdır. Özellikle köpek ve küçük azı dişlerinin bazı özellikleri daha eski A. anamensis ve Ardipithecus ramidus’takilere benzerlik göstermektedir.
- 2025 yılında yayımlanan yeni fosil bulguları, daha önce herhangi bir türe kesin olarak atfedilemeyen Burtele ayağının (BRT-VP-2/73) A. deyiremeda’ya ait olduğunu güçlü biçimde desteklemiştir. Ayak yapısı iki ayak üzerinde hareket etmenin yanı sıra ağaçlara tırmanma ve kavramaya yönelik özelliklerin de korunduğunu göstermektedir.
- Diş minesindeki karbon izotoplarının incelenmesi, beslenmesinin ağırlıklı olarak C3 bitkisel kaynaklarına dayandığını göstermektedir. Bu yönüyle A. ramidus ve A. anamensis’e benzerlik gösterir.
- Bulgular, Orta Pliyosen’de Doğu Afrika’da farklı anatomik ve beslenme özelliklerine sahip birden fazla hominan türünün bir arada yaşadığını göstermektedir.
Australopithecus africanus:
Taung Child adı verilen kafatası fosili, 1924 yılında Güney Afrika’nın Taung bölgesinde bulundu ve Raymond Dart tarafından A. africanus olarak tanımlandı (Dart, 1925). Yaklaşık 2,8 milyon yıllık olan fosil, öldüğünde yaklaşık 3,3 yaşında olan bir çocuğa aittir.
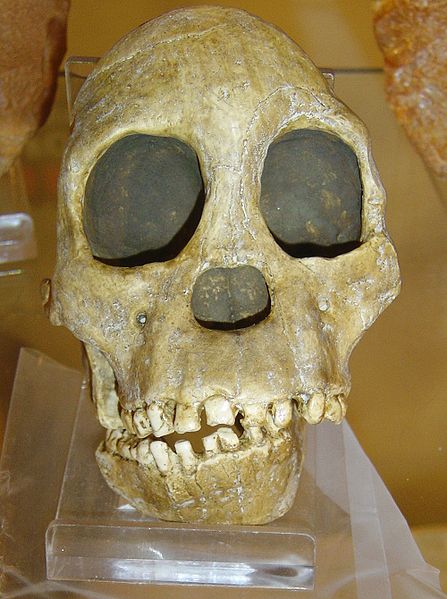
Resim: Taung Child (A. africanus) kafatası replikası, Doğa Tarihi Müzesi, Londra
- Beyin hacmi yaklaşık 420–550 cm³ aralığındadır.
- Yaklaşık 3,3–2,1 milyon yıl önce yaşamıştır.
- Erkeklerin ortalama 138 cm boyunda ve 41 kg, dişilerinse yaklaşık 115 cm boyunda ve 30 kg ağırlığında olduğu tahmin edilmektedir.
- Pelvis, uyluk ve ayak kemikleri düzenli olarak iki ayak üzerinde yürüdüğünü gösterirken, omuz ve el kemikleri ağaçlara tırmanma yeteneğini de koruduğuna işaret etmektedir. Taung Child’ın kafatasının altında bulunan foramen magnumun konumu da, başın omurga üzerinde taşındığını ve iki ayaklılığı desteklemektedir.
- A. afarensis’e göre daha yuvarlak bir kafatasına ve daha büyük bir beyne, daha küçük dişlere ve daha az çıkıntılı bir yüze sahipti; buna karşın uzun kollar ve öne doğru uzanan çene gibi bazı daha ilkel özellikleri koruyordu.
- Taung Child’ın göz çukurlarındaki izler ve aynı bölgede bulunan diğer hayvan kalıntıları, çocuğun büyük bir yırtıcı kuş tarafından öldürülmüş olabileceğine ilişkin güçlü kanıtlar sunmaktadır.
Australopithecus garhi:
BOU-VP-12/130 adı verilen kısmi kafatası fosili, Etiyopya’nın Orta Awash bölgesindeki Bouri’de bulundu ve Australopithecus garhi olarak tanımlandı (Asfaw vd., 1999).
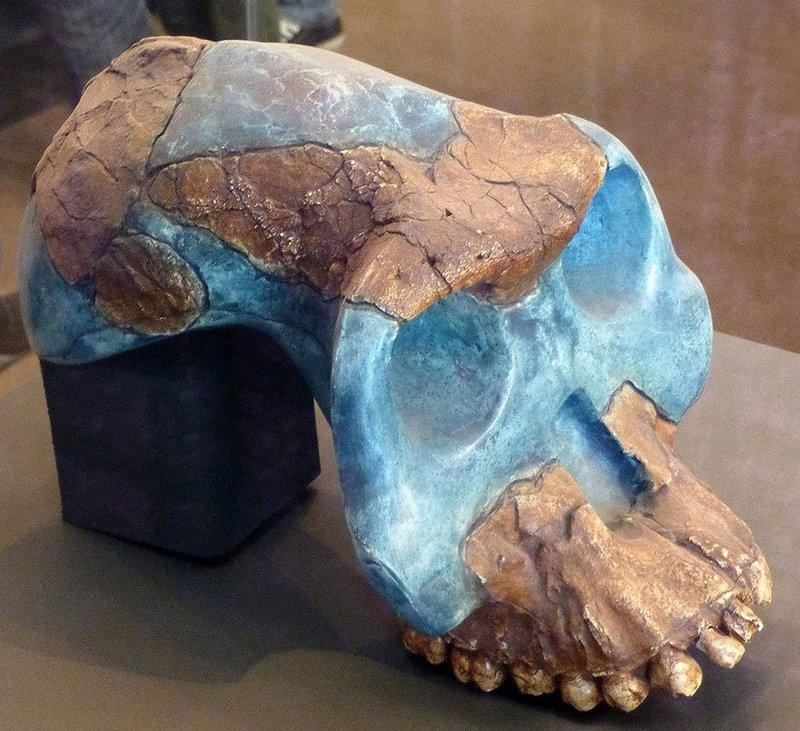
Resim: A. garhi BOU-VP-12/130 kafatası rekonstrüksiyonu, Etiyopya Ulusal Müzesi, Addis Ababa
- Beyin hacmi yaklaşık 450 cm³ olarak tahmin edilmektedir.
- Yaklaşık 2,5 milyon yıl önce yaşamıştır.
- A. garhi az sayıda fosille bilinmektedir. Kafatasının yanı sıra aynı bölge ve döneme ait bazı iskelet kalıntıları da bu türle ilişkilendirilmektedir.
- Yakınında bulunan kısmi iskelette, diğer Australopithecus örneklerine göre daha uzun bir uyluk kemiğiyle birlikte uzun kollar görülmektedir. Bu özellikler iki ayaklı yürüyüşte daha uzun adımlara doğru bir değişime işaret ediyor olabilir.
- Yüzü öne doğru çıkıntılıdır; arka dişleri oldukça büyük ve kalın minelidir. Beyin büyüklüğü ise diğer Australopithecus türlerine benzerlik gösterir.
- A. garhi fosillerinin bulunduğu tabakalarda kesme ve kırma izleri taşıyan hayvan kemikleri bulunmuştur. Bunlar, taş aletlerle et ve kemik iliği elde edildiğine işaret eder; ancak aletleri A. garhi’nin yaptığı kesin olarak bilinmemektedir.
- A. garhi’nin insan evrim ağacındaki yeri kesin değildir. Onu ilk tanımlayan araştırmacılar, onun Homo cinsinin atalarına yakın olabileceğini öne sürmüşlerdir; ancak bunu kesinleştirecek yeterli fosil bulunmamaktadır.
Australopithecus sediba:
Karabo (MH1) adı verilen genç erkek bireye ait kısmi iskelet fosilinin ilk parçası, 2008 yılında Güney Afrika’daki Malapa Mağarasında Matthew Berger tarafından bulundu ve fosiller Australopithecus sediba olarak tanımlandı (Berger vd., 2010).
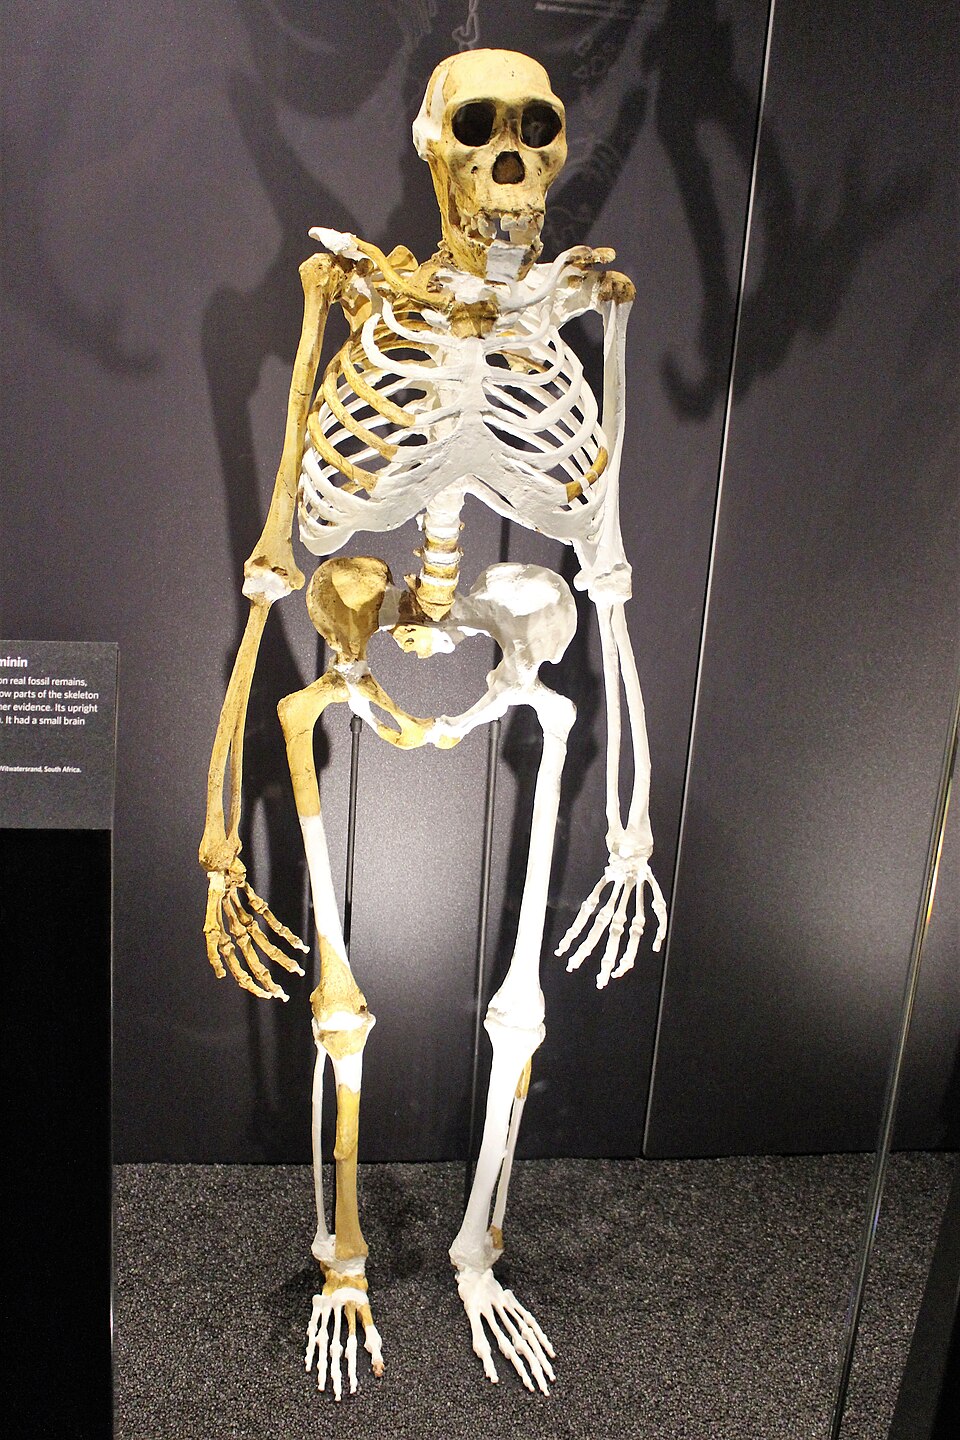
Resim: Karabo (MH1; A. sediba) iskelet rekonstrüksiyonu, Doğa Tarihi Müzesi, Londra
- Beyin hacmi MH1 için yaklaşık 420 cm³ olarak tahmin edilmektedir.
- Yaklaşık 1,98 milyon yıl önce yaşamıştır.
- Karabo, öldüğünde 12–13 yaşında olan genç bir erkeğe aittir ve boyunun en fazla 130 cm olduğu tahmin edilmektedir. Aynı alanda yetişkin bir dişiye ait MH2 adlı oldukça iyi korunmuş başka bir kısmi iskelet de bulunmuştur.
- A. sediba iki ayak üzerinde yürüyordu; ancak uzun kolları ve el-ayak anatomisindeki bazı özellikler ağaçlara tırmanma yeteneğini de koruduğunu göstermektedir. Yürüme biçimi modern insanınkinden farklıydı.
- Kafatası, dişler, pelvis ve ellerinde hem daha önceki Australopithecus türlerini hem de Homo cinsini hatırlatan özelliklerin bir arada bulunduğu bir anatomik yapı görülür. MH2’nin eli, uzun bir başparmak ve modern insan gibi hassas kavramaya uygun özellikler taşırken, aynı zamanda ağaç yaşamıyla ilişkili özellikleri de korumuştur.
- A. sediba, özellikle pelvis, dişler ve diğer bazı anatomik özelliklerindeki Homo benzeri özellikler nedeniyle Homo cinsinin kökeni açısından önemli bir türdür. İlk tanımlandığında Homo’nun olası atalarından biri olabileceği öne sürülmüş olsa da, bilinen en eski Homo fosilleri A. sediba’dan daha eskidir; bu nedenle Homo’nun doğrudan atası olduğu kabul edilmiş değildir.
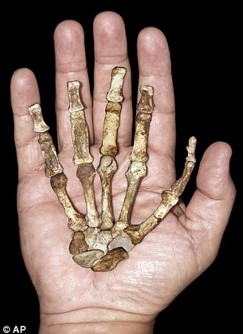
Resim: A. sediba’ya ait yetişkin dişi MH2’nin sağ el fosili, modern insan eliyle karşılaştırmalı olarak gösterilmiştir.
Buraya kadar anlatılan A. anamensis, A. afarensis, A. africanus, A. garhi ve A. sediba gibi türler, daha hafif yapılı kafatası, çene ve diş özellikleri nedeniyle gracile (narin yapılı) australopitler olarak adlandırılır. Birazdan ele alınacak Paranthropus türleri (P. aethiopicus, P. robustus ve P. boisei) ise daha büyük çene ve arka dişleri, güçlü çiğneme sistemleri ve güçlü kafatası özellikleri nedeniyle robust (güçlü yapılı) australopitler olarak bilinir. Bu ayrım resmi bir taksonomik sınıflandırmadan çok anatomik özellikleri tanımlamak için kullanılan geleneksel bir ayrımdır. Paranthropus insan evriminin bir yan dalı olarak değerlendirilir ve H. sapiens‘e uzanan soy hattının parçası olarak kabul edilmez.
Paranthropus aethiopicus:
Black Skull (KNM-WT 17000) adı verilen kafatası fosili, 1985 yılında Alan Walker tarafından Kenya’nın Batı Turkana bölgesinde bulundu ve Paranthropus aethiopicus olarak sınıflandırıldı. Fosilin koyu rengi, fosilleşme sırasında manganez bakımından zengin topraktaki mineralleri emmesinden kaynaklanmaktadır. P. aethiopicus az sayıda fosille bilinmektedir. Black Skull, bu türe ait bilinen tek yetişkin kafatasıdır.
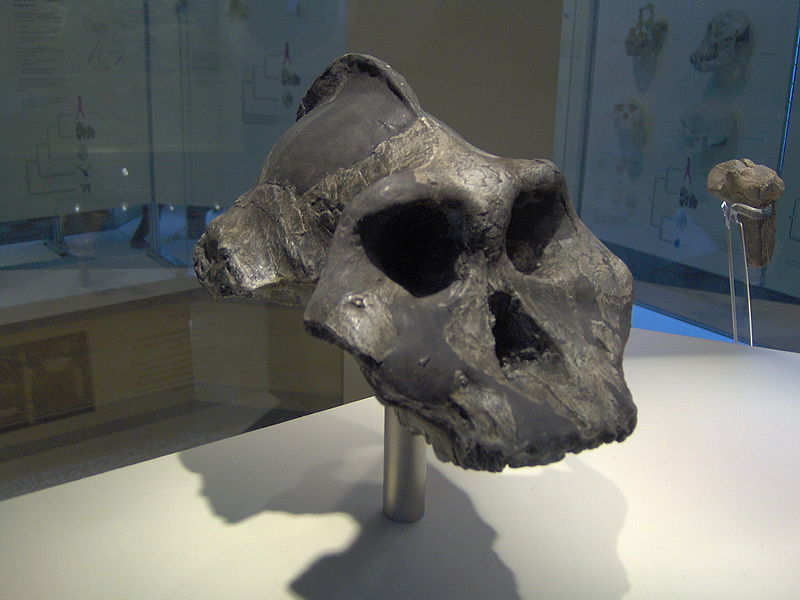
Resim: Black Skull (KNM-WT 17000; P. aethiopicus) kafatası fosili, Doğa Tarihi Müzesi, Londra.
- Beyin hacmi yaklaşık 410 cm³
- Yaklaşık 2,7–2,3 milyon yıl önce yaşamıştır. Fosilleri Kenya ve Etiyopya’da bulunmuştur. Black Skull yaklaşık 2,5 milyon yıl öncesine tarihlenmektedir.
- Türe kesin olarak atfedilebilen yeterli uzuv kemiği bulunmadığından hareket biçimi hakkında doğrudan kanıtlar sınırlıdır.
- Yüzü belirgin biçimde öne çıkıntılı, elmacık kemerleri geniş, çenesi güçlü ve arka dişleri büyüktür. Kafatasının tepesindeki belirgin sagital kret, güçlü çiğneme kaslarının tutunmasını sağlıyordu. Black Skull, bilinen erken hominanlar arasında en büyük sagital kretlerden birine sahiptir.
- P. aethiopicus, ilkel ve robust özellikleri bir arada taşır ve bilinen en erken robust australopitlerden biridir. Daha sonraki Doğu Afrika türü P. boisei ile yakın evrimsel ilişkisi olduğu düşünülmektedir.
Paranthropus robustus :
TM 1517 adı verilen kafatası ve iskelet kalıntıları, 1938 yılında Güney Afrika’nın Kromdraai bölgesinde bulundu ve Paranthropus robustus olarak tanımlandı (Broom, 1938). Önemli fosilleri arasında TM 1517’nin yanı sıra SK 48 ve DNH 7 (Eurydice) kafatasları bulunmaktadır. SK 48, 1950 yılında Swartkrans’ta; DNH 7 ise 1994 yılında Drimolen’de bulunmuştur.
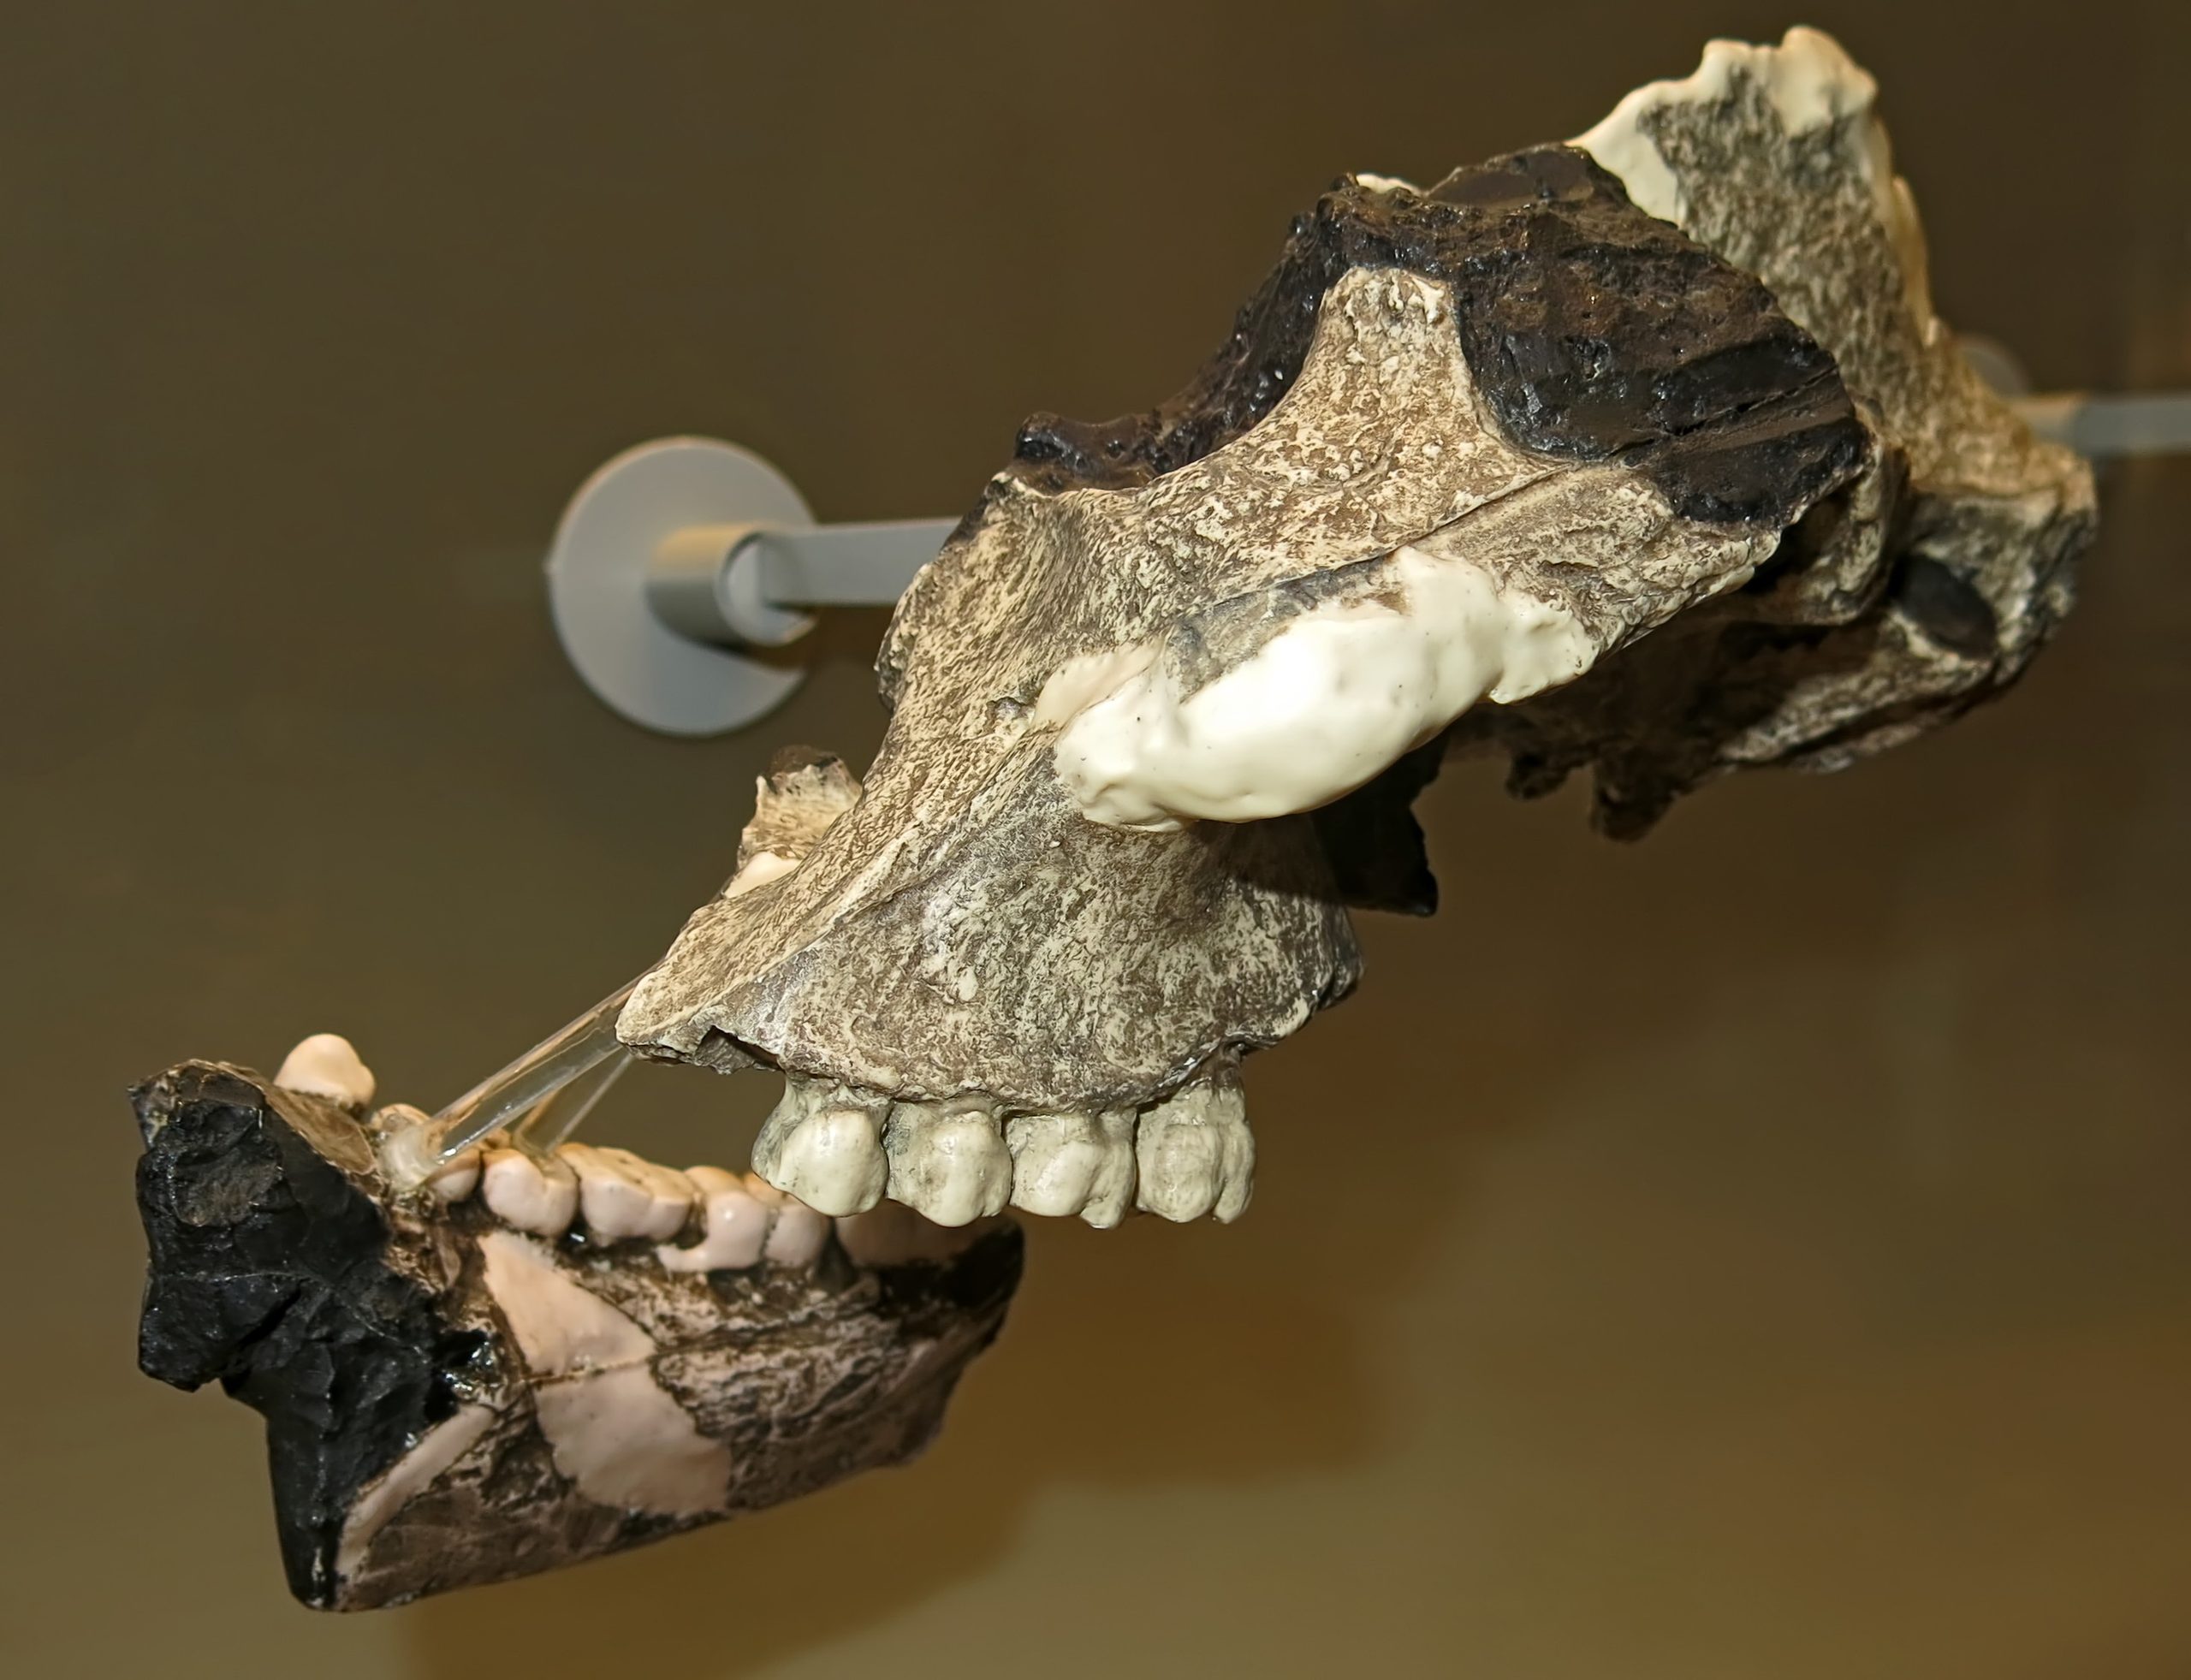
Resim: TM 1517 (P. robustus) kafatası ve alt çene fosili, Viyana Doğa Tarihi Müzesi
- Beyin hacmi yaklaşık 530 cm³
- Yaklaşık 1,8–1,2 milyon yıl önce yaşamıştır. Fosilleri Güney Afrika’da bulunmuştur.
- İki ayak üzerinde yürüyordu. Erkeklerin ortalama 120 cm, dişilerin ise yaklaşık 100 cm boyunda olduğu tahmin edilmektedir.
- Ön dişleri görece küçük, azı ve küçük azı dişleri ise çok büyük ve kalın minelidir. Geniş elmacık kemerleri ve özellikle erkeklerde görülen sagital kret, güçlü çiğneme kaslarının gelişmesine olanak sağlamıştır. “Robust” tanımlaması vücut iriliğinden çok bu güçlü çene, diş ve yüz yapısını ifade eder.
- P. robustus fosilleriyle aynı alanlarda bulunan kemik aletler üzerinde yapılan deneysel ve mikroskobik çalışmalar, bunların termit yuvalarını kazmak için kullanılmış olabileceğini göstermektedir. Ancak bu aletleri P. robustus’un kullandığı kesin olarak kanıtlanmış değildir.
Paranthropus boisei:
OH 5 (Zinj) adı verilen neredeyse eksiksiz kafatası, 1959 yılında Tanzanya’daki Olduvai Boğazı’nda bulundu ve başlangıçta Zinjanthropus boisei olarak tanımlandı (Leakey, 1959). Büyük dişleri ve güçlü çiğneme yapısı nedeniyle Nutcracker Man (Fındıkkıran Adam) olarak da bilinen fosil, daha sonra Australopithecus boisei olarak sınıflandırıldı; günümüzde ise Paranthropus boisei türüne ait kabul edilmektedir.
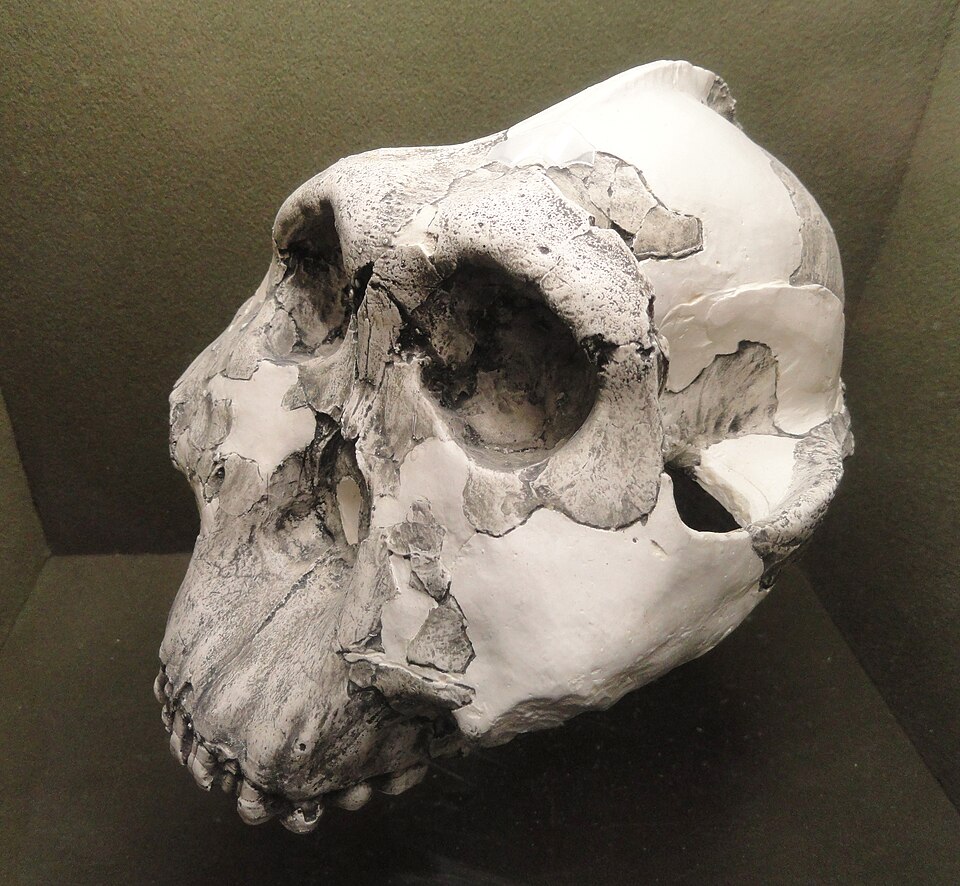
Resim: OH 5 (Zinj; P. boisei) kafatası replikası
- Beyin hacmi yaklaşık 500–550 cm³
- Yaklaşık 2,3–1,2 milyon yıl önce yaşamıştır. Fosilleri Doğu Afrika’da Etiyopya, Kenya, Tanzanya ve Malawi’de bulunmuştur.
- OH 5, yaklaşık 1,8 milyon yıl öncesine tarihlenmektedir.
- P. robustus’a benzemekle birlikte yüzü daha geniş ve yassıdır. İleriye ve yanlara doğru genişleyen elmacık kemerleri, büyük çiğneme kasları için geniş alan sağlamıştır. Erkeklerde belirgin sagital kret bulunur.
- Ön dişleri görece küçükken azı ve küçük azı dişleri son derece büyük ve kalın minelidir. Bu özellikler güçlü bir çiğneme sistemine işaret eder; ancak diş aşınmalarına ilişkin çalışmalar, sert besinlerin her zaman temel besinleri olmadığını göstermektedir.
Homo gautengensis:
Güney Afrika’da daha önce keşfedilen StW 53, SK 847 ve diğer bazı fosillerin yeniden değerlendirilmesi sonucunda, 2010 yılında Homo gautengensis adı verilen yeni bir tür önerildi ve Sterkfontein’de bulunan StW 53 kısmi kafatası türün tip örneği olarak belirlendi (Curnoe, 2010). Ancak H. gautengensis’in ayrı bir tür olarak geçerliliği genel kabul görmemektedir.
Resim: StW 53 (H. gautengensis olarak önerilen) kısmi kafatası rekonstrüksiyonu
- Beyin hacmi StW 53 için yaklaşık 510 cm³ olarak tahmin edilmektedir.
- H. gautengensis’e atfedilen fosiller yaklaşık 2 milyon ile 1 milyon yıl öncesine uzanan geniş bir zaman aralığına yayılmaktadır.
- Tür, StW 53 ve diğer bazı fosillerin kafatası, çene ve diş özelliklerindeki benzerliklere dayanılarak erken Homo içinde sınıflandırılmasıyla önerilmiştir. Ancak StW 53 geçmişte H. habilis ve Australopithecus africanus ile de ilişkilendirilmiş, türe atfedilen fosillerin gerçekten aynı türü temsil edip etmediği tartışmalı kalmıştır.
Homo rudolfensis:
KNM-ER 1470 adı verilen büyük ölçüde korunmuş kafatası, 1972 yılında Kenya’daki Koobi Fora bölgesinde bulundu. Başlangıçta Homo habilis ile ilişkilendirilen fosil, daha sonra Homo rudolfensis adı altında sınıflandırıldı. Türün ayrı bir tür olarak geçerliliği ve hangi fosillerin bu türe ait olduğu hâlen tartışmalıdır.
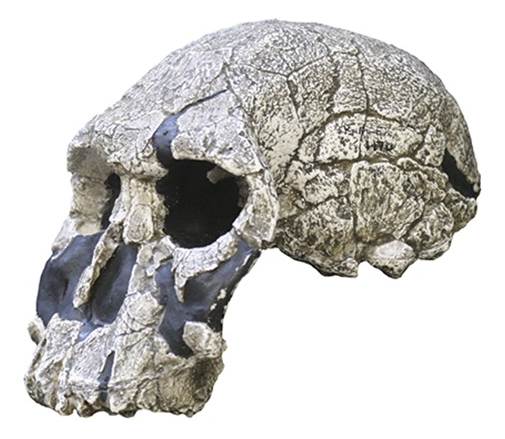
Resim: KNM-ER 1470 (H. rudolfensis) kafatası rekonstrüksiyonu
- Beyin hacmi KNM-ER 1470 için yaklaşık 750 cm³ olarak tahmin edilmektedir.
- Yaklaşık 2,4–1,6 milyon yıl öncesine tarihlenen fosilleri Doğu Afrika’da bulunmuştur.
- H. rudolfensis, H. habilis’e göre daha geniş, düz bir yüze ve daha büyük çene ve arka dişlere sahip olmasıyla ayırt edilir.
- Vücut yapısı hakkında bilgiler sınırlıdır; çünkü H. rudolfensis’e güvenilir biçimde bağlanabilen iskelet kalıntıları bulunmamaktadır. Bu nedenle boyu, vücut ağırlığı ve vücut oranları kesin olarak bilinmemektedir.
- H. rudolfensis ile H. habilis’in gerçekten iki ayrı türü temsil edip etmediği ve erken Homo içindeki konumları tartışılmaya devam etmektedir.
Homo habilis:
Fosilleri Doğu ve Güney Afrika’da bulunmuştur. OH 7 adı verilen alt çene, kafatası parçaları ve el kemiklerinden oluşan fosil, 1960 yılında Tanzanya’daki Olduvai Boğazı’nda bulundu ve Homo habilis olarak tanımlandı (Leakey vd., 1964). Önemli fosilleri arasında OH 7 dışında OH 24 (Twiggy) ve KNM-ER 1813 bulunmaktadır. OH 24, 1968 yılında Tanzanya’daki Olduvai Boğazı’nda; KNM-ER 1813 de 1973 yılında Kenya’daki Koobi Fora’da bulunmuştur.
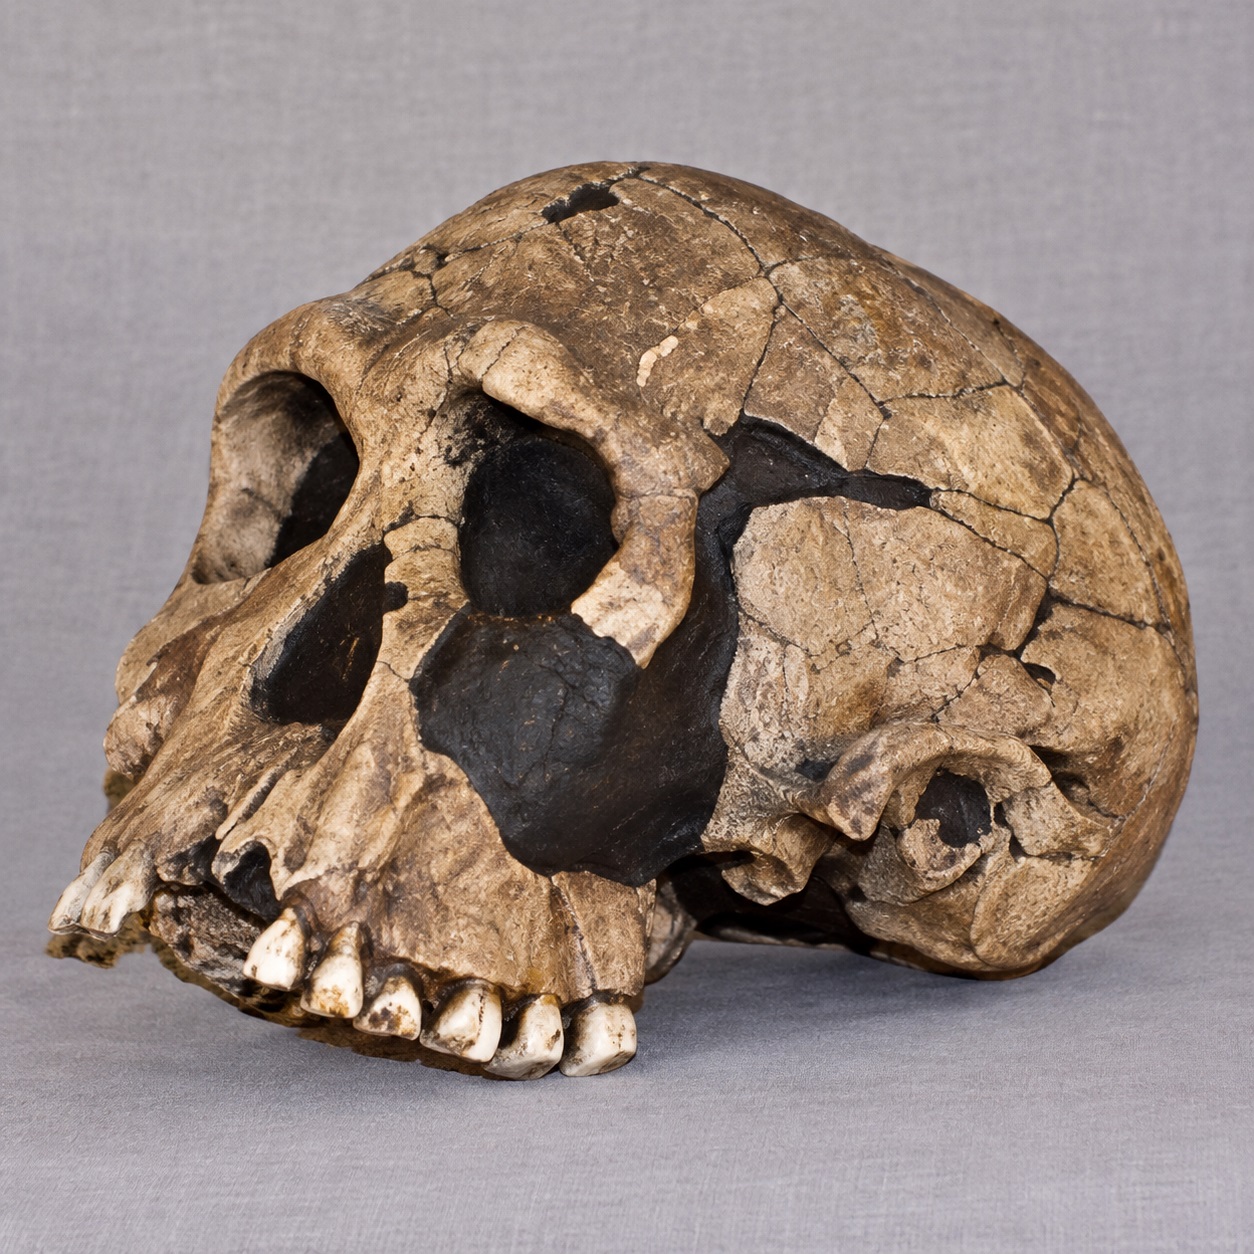
Resim: OH 24 “Twiggy” (H. habilis) kafatası rekonstrüksiyonu
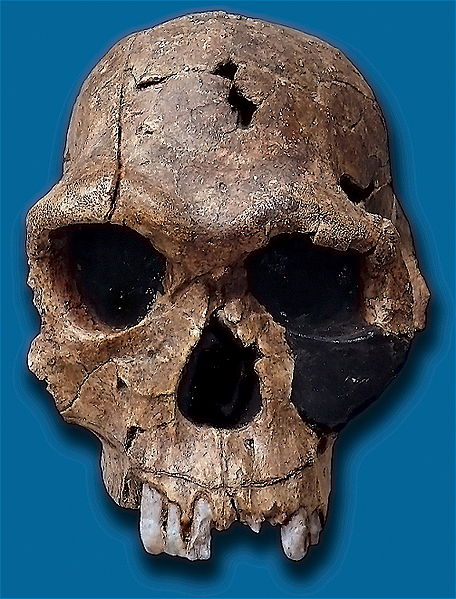
Resim: KNM-ER 1813 (H. habilis) kafatası rekonstrüksiyonu
- Beyin hacmi yaklaşık 500–700 cm³ aralığındadır. KNM-ER 1813 yaklaşık 510 cm³, OH 24 (Twiggy) ise 600 cm³’ün biraz altındadır.
- Yaklaşık 2,4–1,4 milyon yıl önce yaşamıştır.
- H. habilis, Australopithecus türlerine göre genel olarak daha büyük bir beyne, daha küçük yüz ve dişlere sahipti; ancak vücut yapısında uzun kollar gibi daha ilkel özellikleri koruyordu. Homo cinsinin erken üyelerinden biridir.
- İsmi “becerikli insan” anlamına gelir. H. habilis uzun süre Oldowan taş aletlerinin ilk üreticisi olarak kabul edilmiştir. Ancak Oldowan aletlerini hangi hominan türünün yaptığı her durumda kesin olarak belirlenemediğinden, bu aletlerin yalnızca H. habilis tarafından üretildiğini söylemek doğru değildir.
- Kenya’daki Lomekwi 3 alanında bulunan yaklaşık 3,3 milyon yıllık taş aletler, bilinen taş alet yapımının Homo cinsinden daha eski olduğunu göstermiştir. Bu aletler Oldowan’dan farklıdır ve Lomekwian olarak adlandırılmıştır; üreticilerinin hangi hominan türü olduğu bilinmemektedir.
- Kesme ve kırma izleri taşıyan yaklaşık 2,6 milyon yıllık hayvan kemikleri, erken Homo üyelerinin et ve kemik iliği tükettiğine ilişkin kanıtlar sunmaktadır. Bununla birlikte H. habilis’in “büyük miktarda et yiyen ilk insan” olduğunu söylemek için yeterli kanıt yoktur; beslenmesinin çeşitli bitkisel ve hayvansal kaynakları içerdiği düşünülmektedir.
Homo ergaster:
KNM-ER 992 adı verilen alt çene fosili, 1971 yılında Kenya’daki Koobi Fora’da bulundu ve 1975 yılında Homo ergaster türünün tip örneği olarak belirlendi. Önemli fosilleri arasında KNM-ER 3733 ve Turkana Çocuğu (KNM-WT 15000) bulunmaktadır. H. ergaster’ın ayrı bir tür olarak sınıflandırılması tartışmalıdır; bazı araştırmacılar bu Afrika fosillerini erken H. erectus içinde değerlendirmektedir.
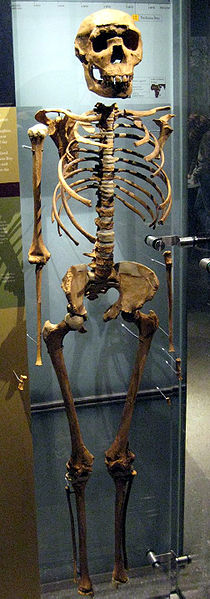
Resim: Turkana Çocuğu (KNM-WT 15000; H. erectus / H. ergaster) iskelet replikası, Amerikan Doğa Tarihi Müzesi, New York
- Beyin hacmi genel olarak yaklaşık 700–900 cm³ aralığındadır.
- Yaklaşık 1,9–1,4 milyon yıl önce Afrika’da yaşamıştır. Türün kesin zaman aralığı, hangi fosillerin H. ergaster içinde sınıflandırıldığına göre değişmektedir.
- Önceki Homo türlerine göre daha uzun bacaklara ve görece kısa kollara sahipti; vücut oranları modern insanınkine daha yakındı ve uzun mesafelerde yürümeye ve muhtemelen koşmaya uygundu.
- Turkana Çocuğu, 1984 yılında Kenya’nın Nariokotome bölgesinde bulunan yaklaşık 1,6 milyon yıllık oldukça eksiksiz bir iskelettir. Öldüğünde yaklaşık 8–9 yaşında ve 160 cm boyundaydı.
- Kafatası önceki Homo türlerine göre daha uzun ve alçaktır; belirgin kaş çıkıntılarına sahipken yüz, çene ve dişler daha eski Homo türlerine göre küçülmüştür.
- H. ergaster, Afrika’daki erken Acheulean taş alet teknolojisiyle aynı dönemde yaşamıştır; ancak bu aletleri yalnızca bu türün ürettiğini kesin olarak söylemek mümkün değildir. En erken Acheulean buluntuları yaklaşık 1,75 milyon yıl öncesine uzanmaktadır.
Homo georgicus:
D2600 adı verilen alt çene fosili, 2000 yılında Gürcistan’daki Dmanisi’de bulundu ve 2002 yılında Homo georgicus olarak tanımlandı (Gabunia vd., 2002). Önemli Dmanisi fosilleri arasında ayrıca D2700/D2735, D2280 ve D2282/D211 de bulunmaktadır.
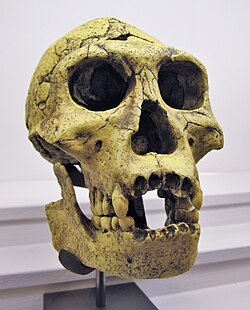
Resim: Dmanisi Skull 3 (D2700; H. georgicus) kafatası replikası
- Beyin hacmi yaklaşık 550–775 cm³ arasındadır; D2700’ün beyin hacmi yaklaşık 600 cm³tür.
- Yaklaşık 1,8 milyon yıl önce yaşamıştır. Dmanisi fosilleri Afrika dışında bilinen en eski Homo örnekleri arasındadır.
- Küçük beyin hacmi ve bazı ilkel özellikleriyle H. habilis’e, diğer özellikleriyle erken H. erectus’a benzerlik gösterir.
- H. georgicus’un ayrı bir tür olup olmadığı tartışmalıdır; Dmanisi fosilleri birçok araştırmacı tarafından erken H. erectus kapsamında değerlendirilmektedir.
Homo erectus:
Trinil 2 (Java İnsanı) adı verilen kafatası parçası, Eugène Dubois tarafından 1891 yılında Endonezya’nın Java Adası’nda bulundu. Başlangıçta Pithecanthropus erectus adı verilen fosil, daha sonra Homo erectus olarak sınıflandırıldı. Önemli fosilleri arasında Çin’deki Pekin İnsanı (Zhoukoudian) ile Endonezya’daki Sangiran ve Ngandong fosilleri bulunmaktadır.
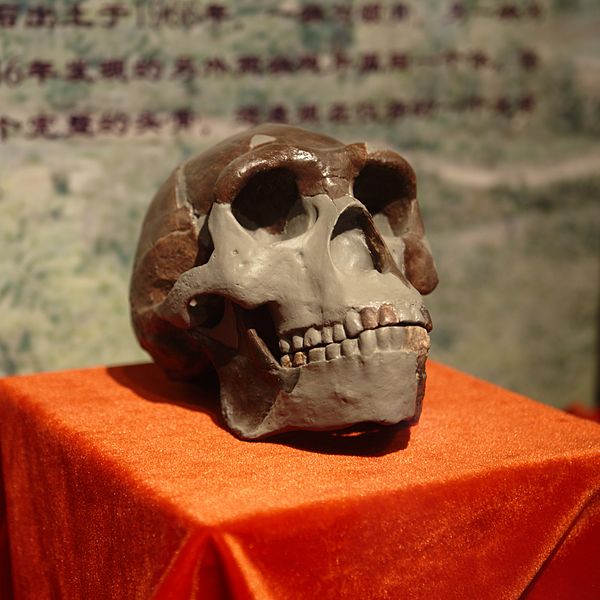
Resim: Pekin İnsanı (H. erectus) kafatası replikası, Çin Paleozoji Müzesi, Pekin
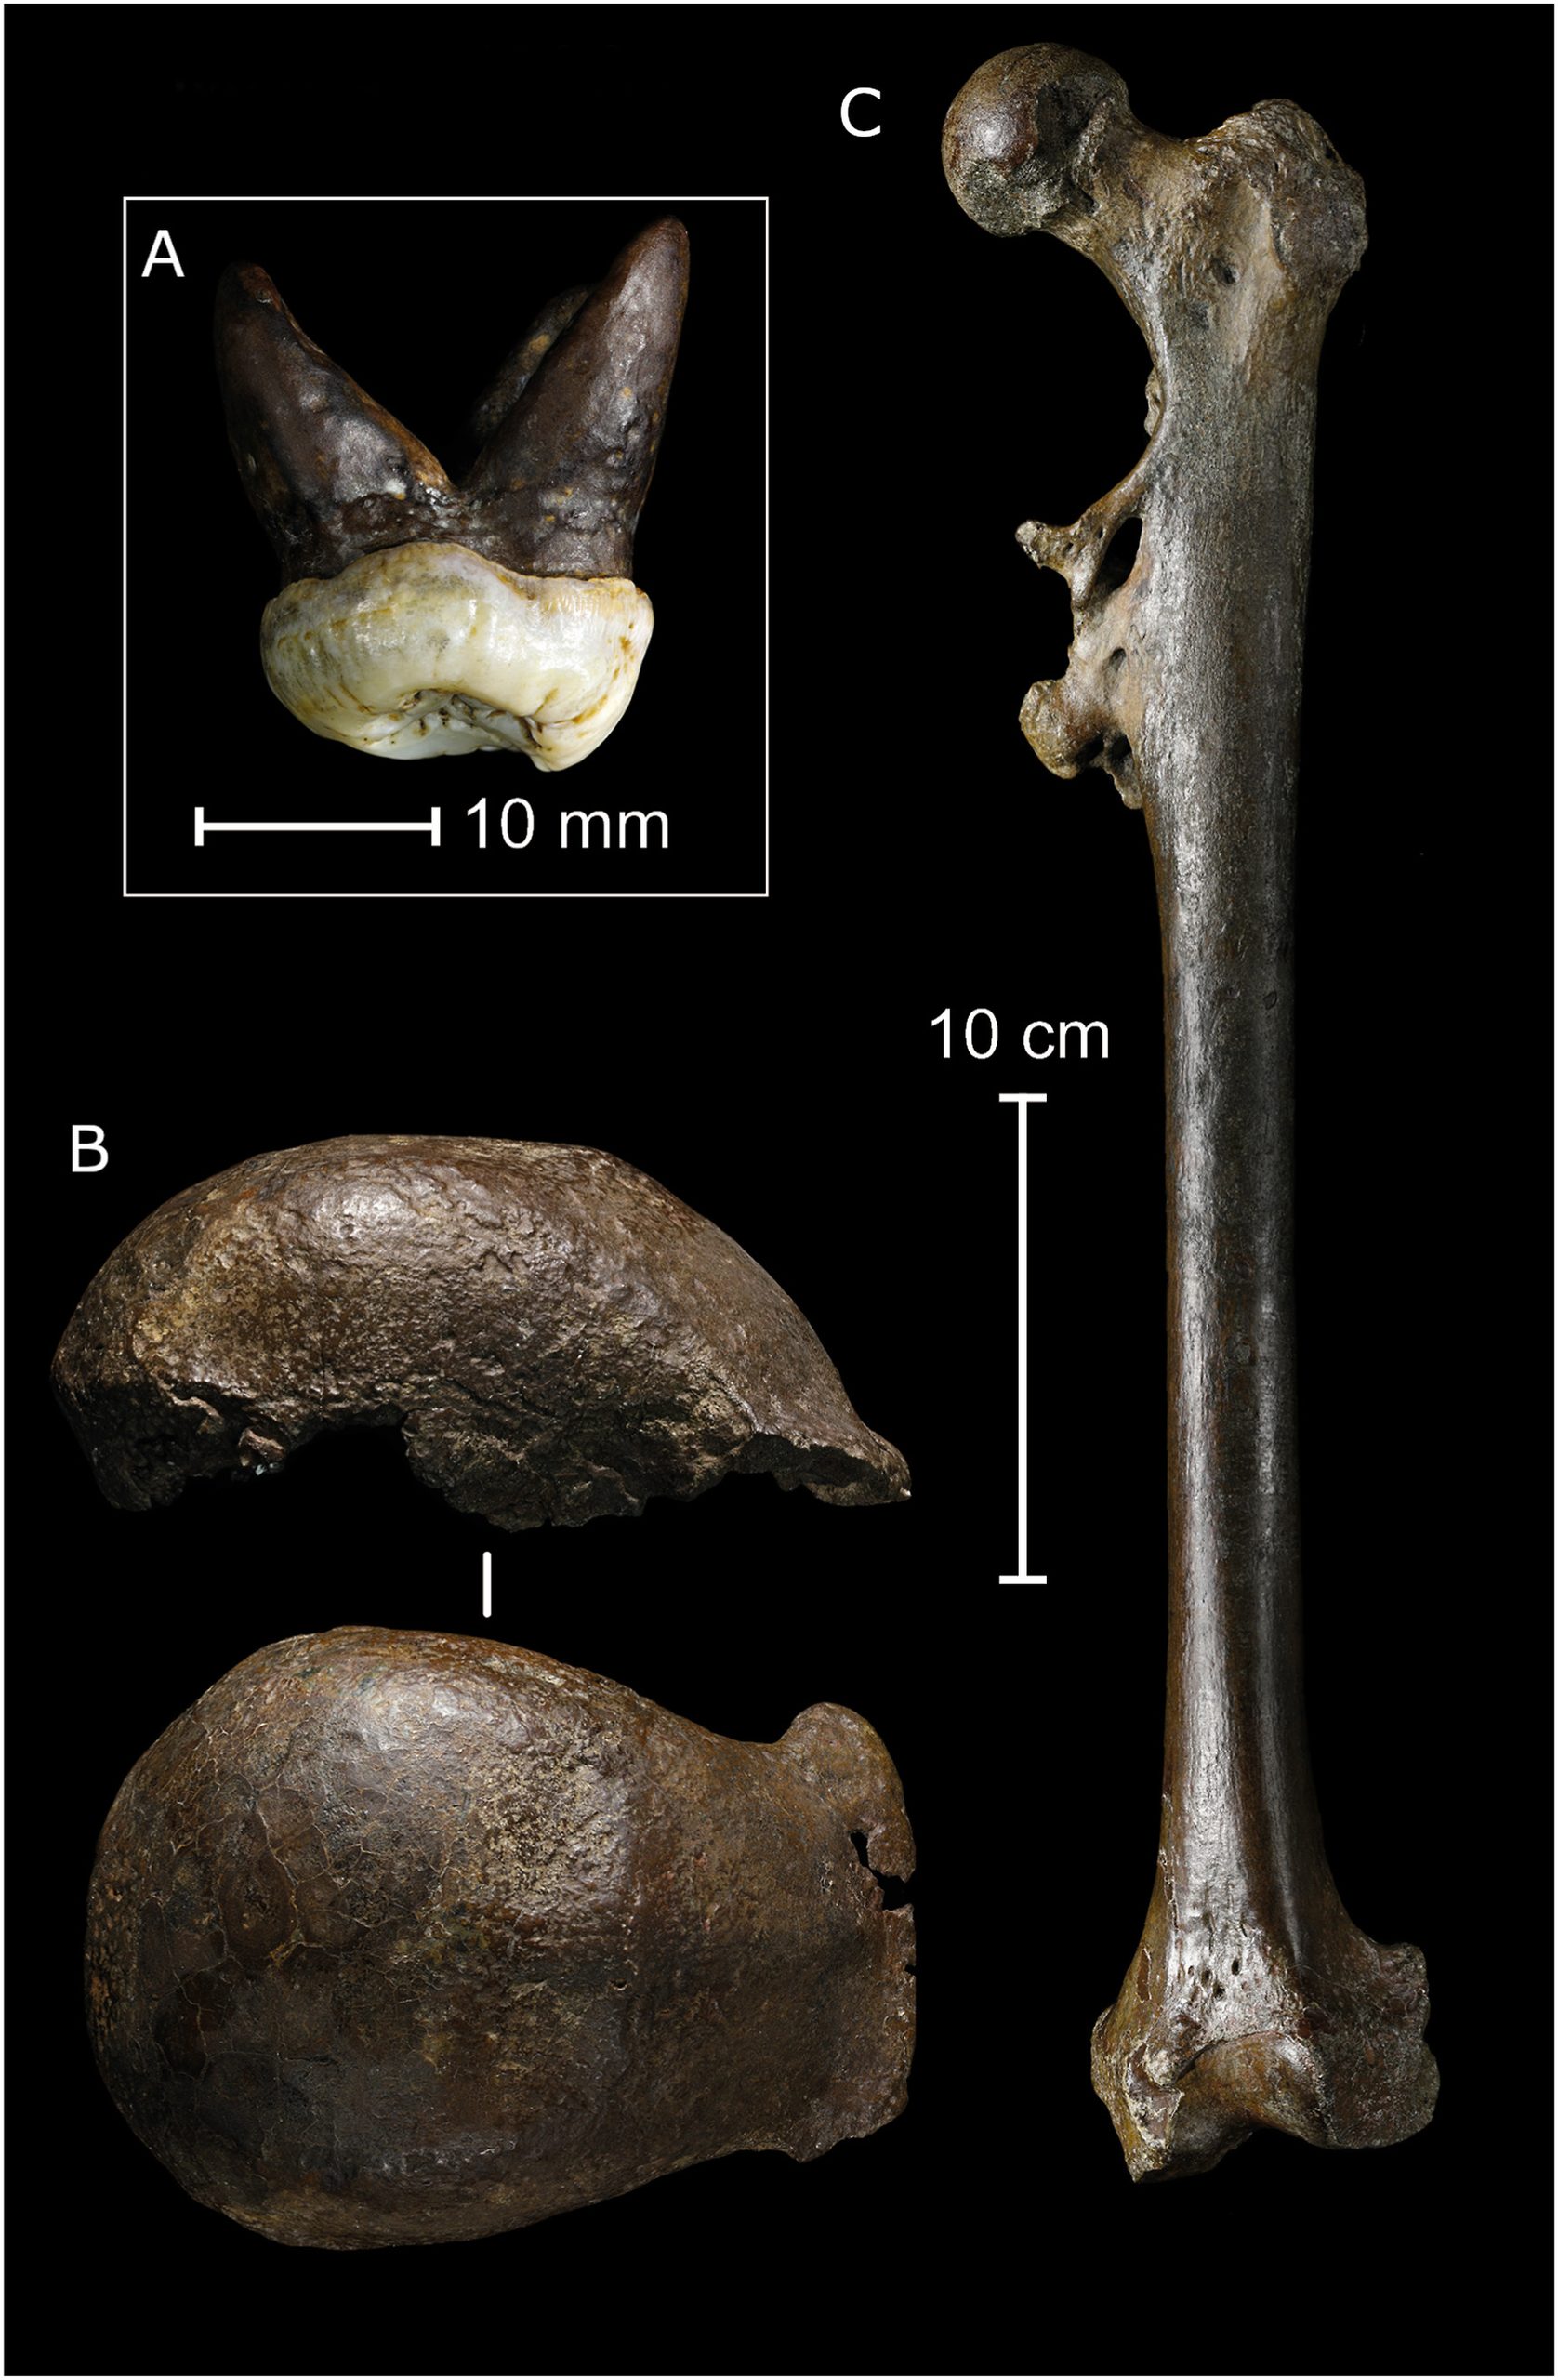
Resim: Java İnsanı (H. erectus) Trinil fosilleri: azı dişi (Trinil 1), kafatası tepesi (Trinil 2) ve uyluk kemiği (Trinil 3).
- Beyin hacmi genel olarak yaklaşık 600–1.100 cm³ arasında değişir ve zaman içinde artış göstermiştir.
- Yaklaşık 1,9 milyon–110 bin yıl önce yaşamıştır ve Asya’nın geniş bir bölümüne yayılmıştır. Afrika’daki erken örneklerin H. erectus mu yoksa ayrı bir tür olarak H. ergaster mı kabul edilmesi gerektiği tartışmalıdır. Ngandong fosilleri yaklaşık 117–108 bin yıl öncesine tarihlenerek türün bilinen en geç örneklerini oluşturur.
- Kafatası uzun ve alçak, kaş çıkıntıları belirgindir ve çene ucu yoktur. Dişleri ve çenesi önceki Homo türlerine göre küçülmüştür.
- H. erectus’la Acheulean el baltaları yakından ilişkilidir; ancak en erken topluluklarının tümü Acheulean aletler kullanmamıştır.
- Ateşin kontrollü kullanımına ilişkin güçlü kanıtlar daha sonraki dönemlerden gelir; yaklaşık 1 milyon yıllık Wonderwerk Mağarası bulguları bunların en erken örnekleri arasındadır.
- Pekin İnsanı fosilleri yaklaşık 780–400 bin yıl öncesine tarihlenmektedir. Orijinal fosillerin büyük bölümü II. Dünya Savaşı sırasında kaybolmuş, daha önce hazırlanmış kalıpları günümüze ulaşmıştır.
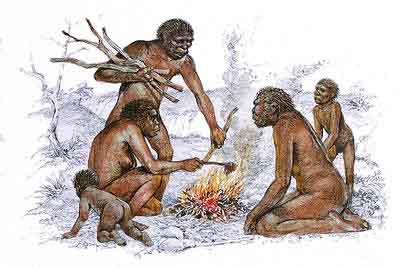
Resim: H. erectus topluluğunda ateş kullanımını gösteren temsili canlandırma.
H. cepranensis ve H. antecessor:
Ceprano 1 adı verilen kafatası tepesi fosili, 1994 yılında İtalya’nın Ceprano bölgesinde bulundu ve daha sonra Homo cepranensis olarak adlandırıldı. Başlangıçta yaklaşık 800–900 bin yıllık olduğu düşünülse de, bulunduğu tabakanın yeniden değerlendirilmesi fosilin yaklaşık 430–385 bin yıl öncesine ait olduğunu göstermiştir. H. cepranensis’in ayrı bir tür olarak geçerliliği tartışmalıdır ve Ceprano 1 başka Orta Pleistosen Homo fosilleriyle de ilişkilendirilmiştir.
ATD6-69 ve aynı türe ait diğer fosiller, İspanya’daki Atapuerca–Gran Dolina’da bulundu ve 1997 yılında Homo antecessor olarak tanımlandı.
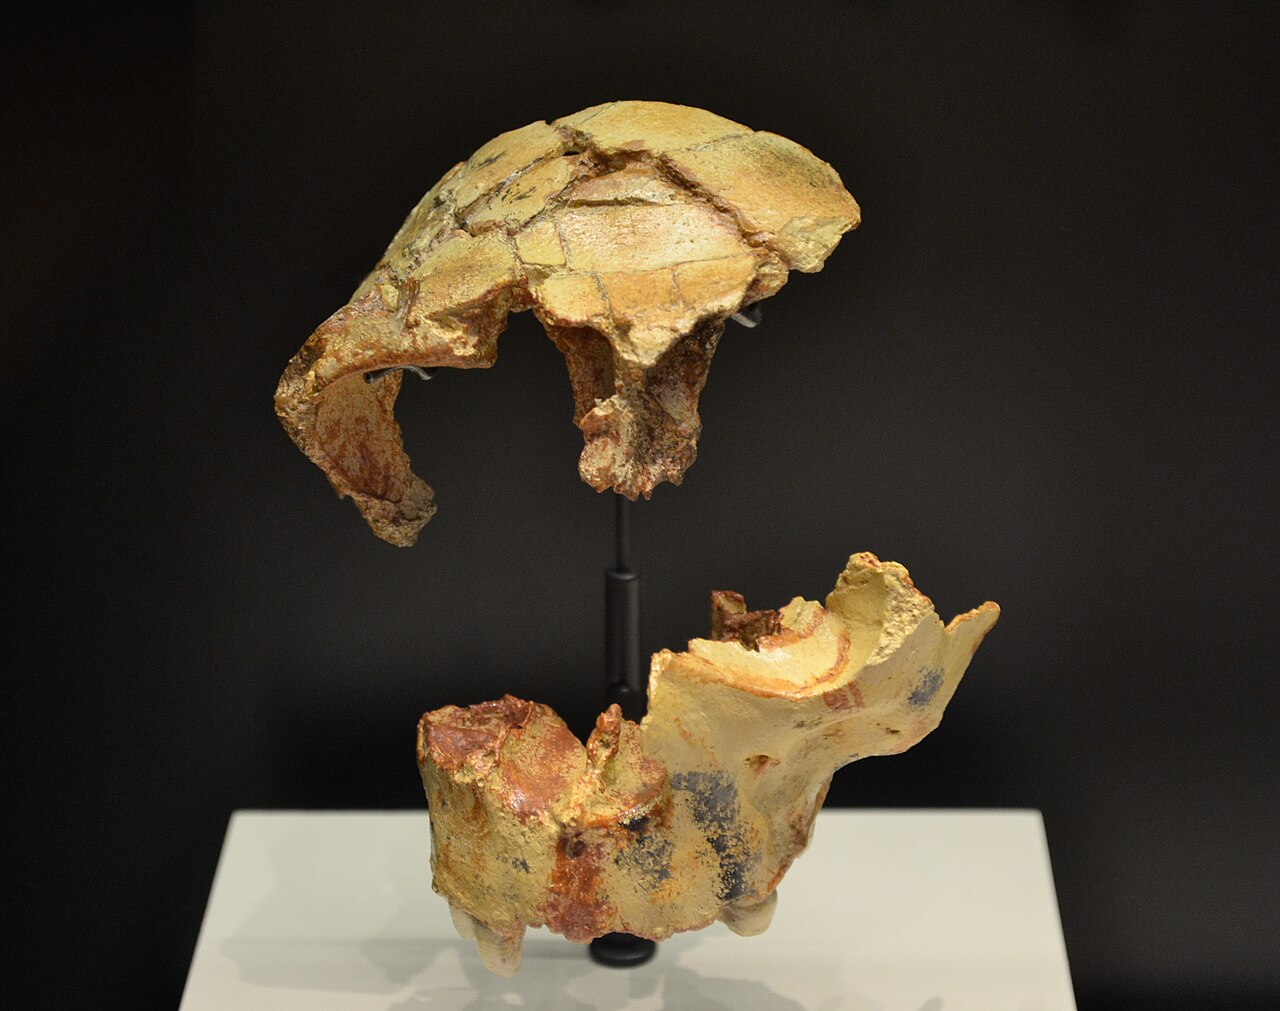
Resim: ATD6-15 ve ATD6-69 (H. antecessor) kafatası rekonstrüksiyonu, İspanya Ulusal Arkeoloji Müzesi, Madrid.
- H. antecessor yaklaşık 950–770 bin yıl önce yaşamıştır. Gran Dolina’daki fosiller ilkel ve daha türemiş anatomik özelliklerin bir bileşimini taşımaktadır.
- H. antecessor’un insan evrimindeki kesin yeri tartışmalıdır; H. erectus ile H. heidelbergensis arasında doğrudan bir geçiş türü olduğu kesin olarak kabul edilmemektedir.
Homo heidelbergensis:
Mauer 1 adı verilen alt çene fosili, 1907 yılında Almanya’nın Heidelberg yakınlarındaki Mauer’de bulundu ve 1908 yılında Homo heidelbergensis olarak tanımlandı. Önemli fosilleri arasında Almanya’daki Mauer 1, Fransa’daki Arago 21, İngiltere’deki Boxgrove kalıntıları ve bu türe atfedilen Afrika’daki Kabwe 1 gibi örnekler bulunmaktadır. Bununla birlikte H. heidelbergensis adı altında hangi fosillerin sınıflandırılması gerektiği günümüzde de tartışmalıdır.
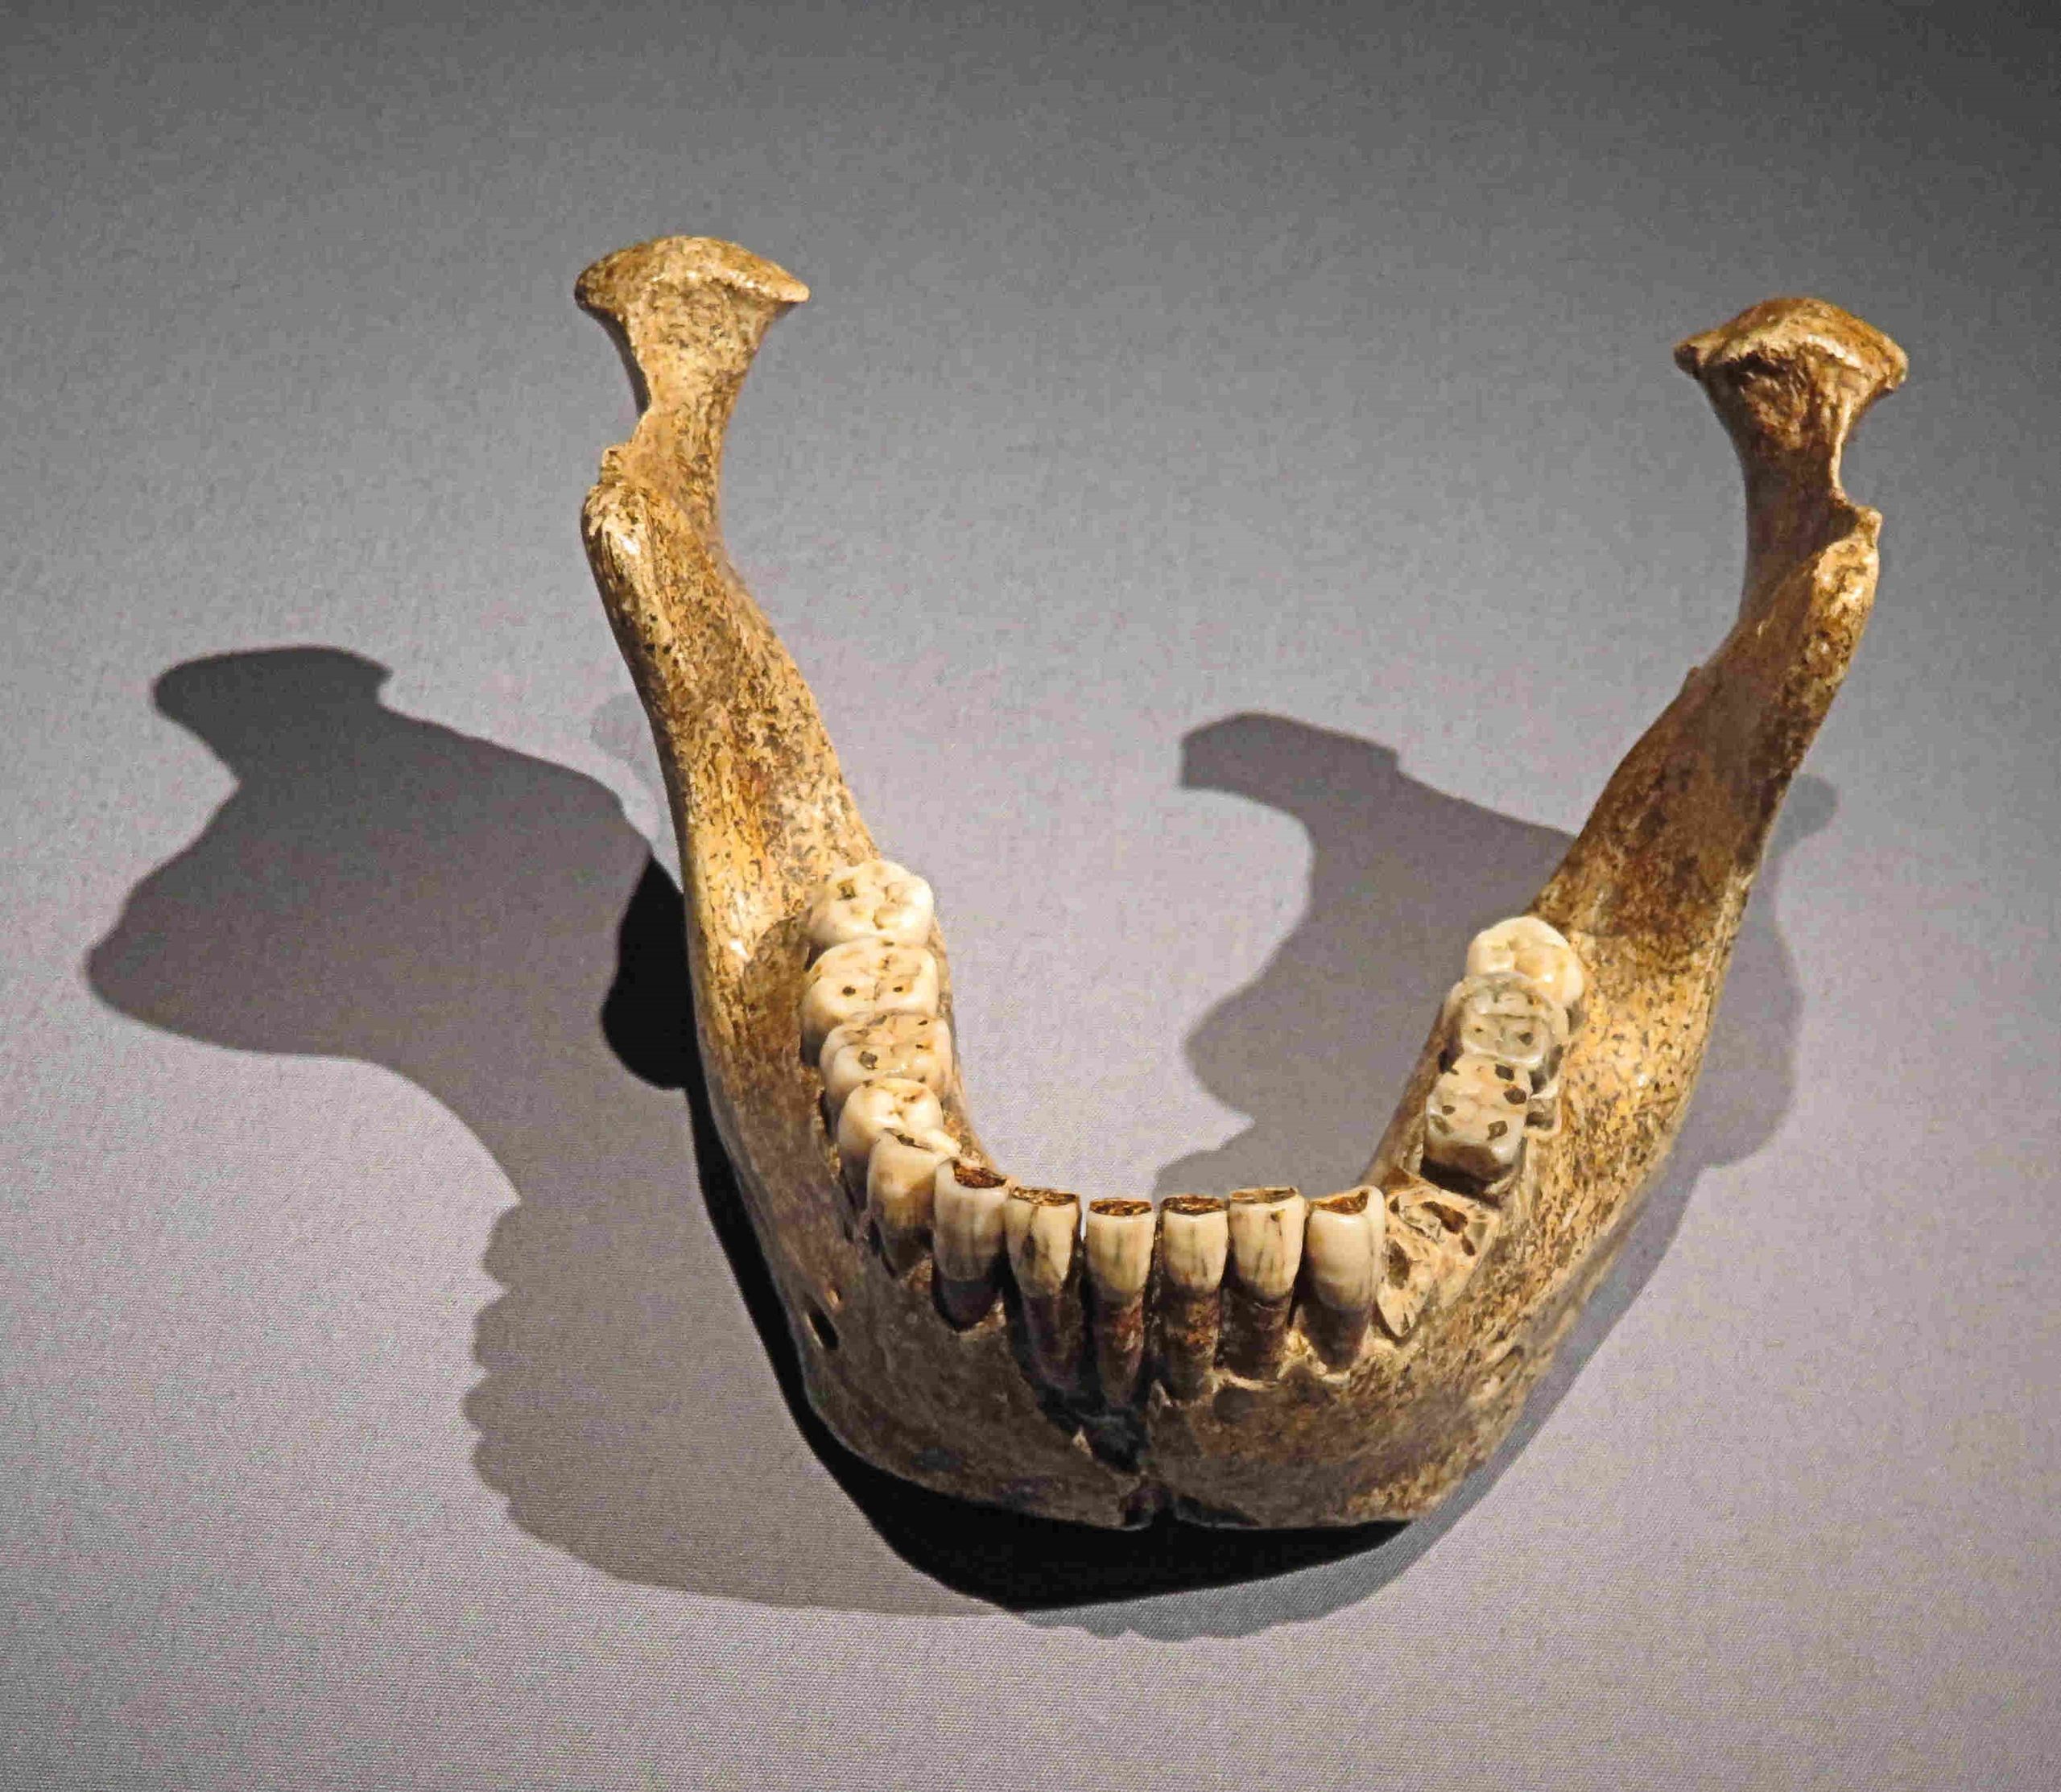
Resim: Mauer 1 (H. heidelbergensis) alt çene replikası, Mauer Müzesi, Almanya.
- Beyin hacmi genellikle yaklaşık 1.100–1.400 cm³ arasındadır. Beyin hacmi H. erectus’tan genel olarak daha büyük, modern insanınkine yaklaşan boyutlardadır.
- Yaklaşık 700–200 bin yıl önce yaşamıştır. Avrupa ve Afrika’daki Orta Pleistosen Homo fosillerinin bir bölümü geleneksel olarak bu türe dahil edilmektedir.
- Kafatası H. erectus’unkinden daha büyük ve daha yuvarlak bir beyin kutusuna sahip olmakla birlikte belirgin kaş çıkıntıları ve kalın kafatası kemikleri gibi arkaik özellikleri korumuştur. İskeleti modern insanınkinden daha iri ve güçlü yapıdadır.
- H. erectus, H. heidelbergensis, erken Neandertaller ve erken H. sapiens arasındaki sınıflandırma sınırları kesin değildir; özellikle Orta Pleistosen fosillerinin evrimsel ilişkileri konusunda farklı görüşler bulunmaktadır.
- İngiltere’deki Boxgrove fosilleri yaklaşık 480 bin yıl öncesine tarihlenmektedir ve genellikle H. heidelbergensis ile ilişkilendirilir.
Homo naledi:
Bu türe ait fosiller 2013 yılında Güney Afrika’nın Gauteng bölgesindeki Rising Star (Yükselen Yıldız) Mağara Sisteminde keşfedildi ve 2015 yılında Homo naledi olarak tanımlandı (Berger vd., 2015). İlk kazılarda 1.550 fosil parçası ve en az 15 birey tespit edildi. “Naledi”, Sesotho dilinde “yıldız” anlamına gelir ve fosillerin keşfedildiği yere atıf yapar.
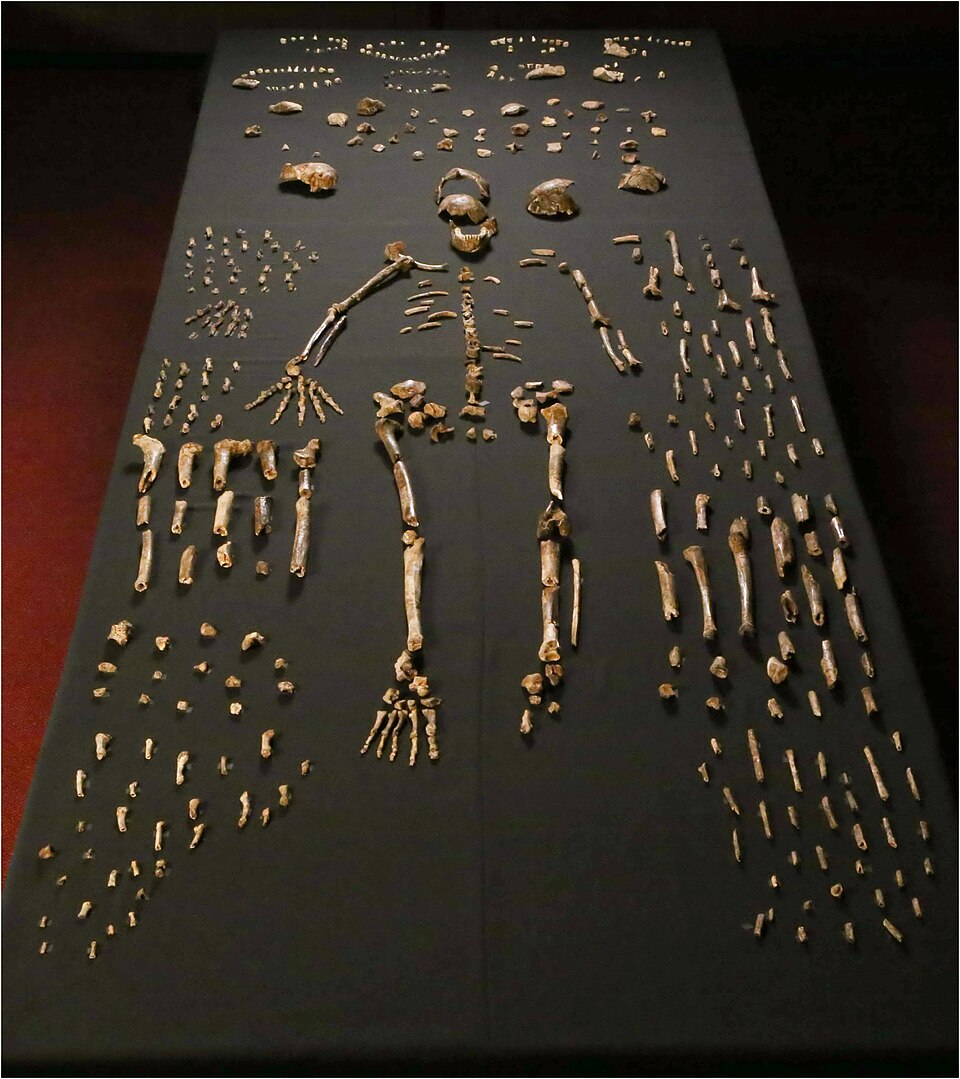
Resim: H. naledi’ye ait fosil kalıntıları, Maropeng Ziyaretçi Merkezi, Cradle of Humankind, Güney Afrika.
- Beyin hacmi yaklaşık 465–610 cm³ arasındadır.
- Fosiller başlangıçta tarihlendirilememişti; 2017’de farklı tarihleme yöntemlerinin birlikte kullanılmasıyla yaklaşık 335–236 bin yıl öncesine tarihlendirildi.
- H. naledi, ilkel ve daha modern özelliklerin bir bileşimine sahiptir. Küçük beyni, omuzları ve gövdesinin bazı özellikleri daha eski hominanları andırırken; elleri, ayakları ve alt uzuvları Homo cinsinin daha sonraki üyelerine benzeyen özellikler taşır.
- Fosillerin mağaranın derin bölümlerinde bulunması, ölülerin buraya bilinçli olarak gömülmüş olabileceği görüşünü ortaya çıkarmıştır. 2025’te yayımlanan çalışma kasıtlı gömmenin kanıtlarla en uyumlu açıklama olduğunu savunurken, başka araştırmacılar mevcut kanıtların bunu kesin olarak göstermediğini belirtmektedir. Bu nedenle kasıtlı gömme konusu hâlen tartışmalıdır.
Homo neanderthalensis:
Neanderthal 1 adı verilen fosil, 1856 yılında Almanya’daki Neander Vadisi’nde bulundu ve 1864 yılında Homo neanderthalensis olarak adlandırıldı. Daha önce Belçika ve Cebelitarık’ta Neandertal fosilleri bulunmuş olsa da bunların Neandertallere ait olduğu daha sonra anlaşılmıştır. Önemli fosilleri arasında Neanderthal 1, Krapina 3, La Ferrassie 1, Tabun 1, La Quina 5 ve Shanidar fosilleri bulunmaktadır.
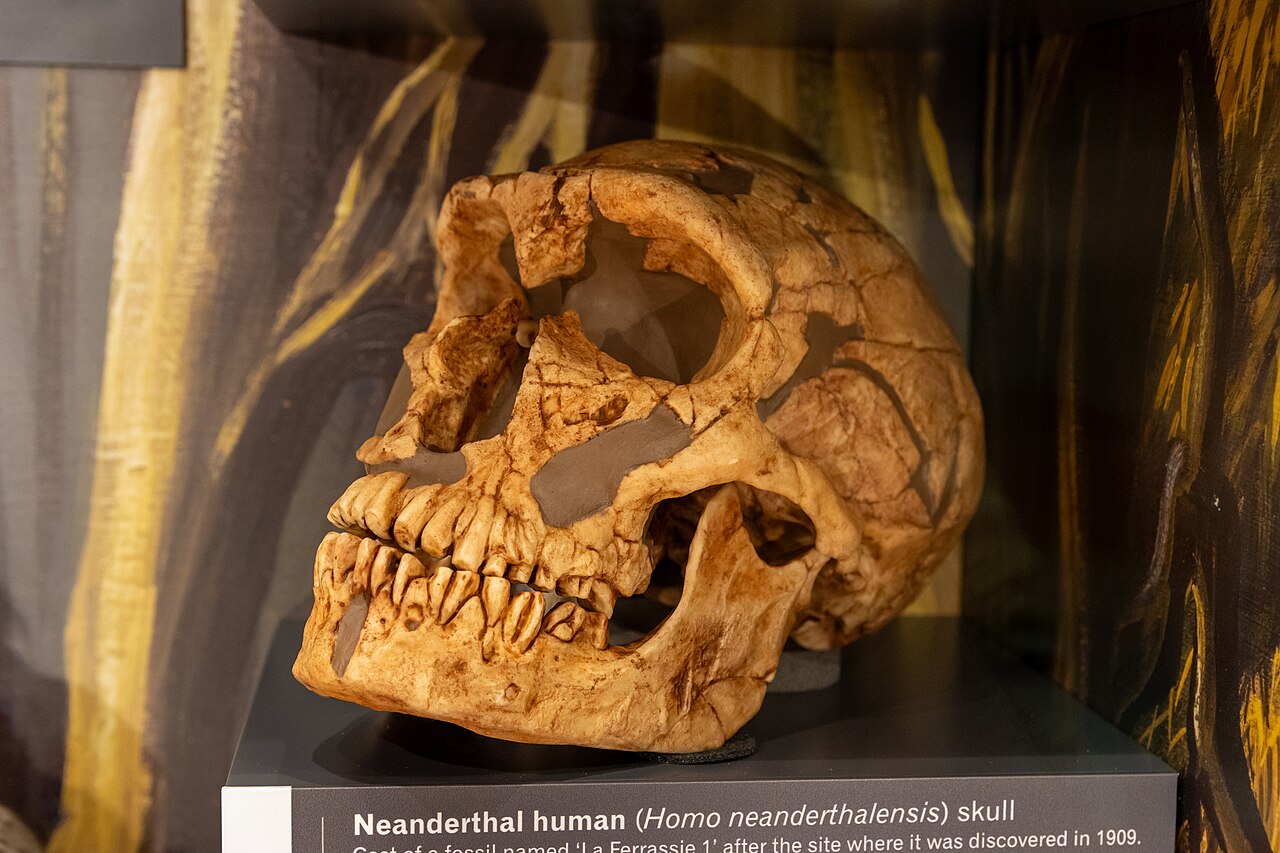
Resim: La Ferrassie 1 (H. neanderthalensis) kafatası replikası, Wollaton Hall, Nottingham, İngiltere.
- Neandertaller yaklaşık 400–40 bin yıl önce Avrupa ile Batı ve Orta Asya’da yaşamıştır. Neandertal soyuna ait daha erken özellikler yaklaşık 430 bin yıllık Sima de los Huesos fosillerinde de görülmektedir.
- Beyin hacimleri yaklaşık 1.200–1.750 cm³ arasında değişir ve ortalamaları modern insanınkinden biraz daha büyüktür. Bununla birlikte Neandertallerin vücutları da modern insanlardan genel olarak daha iri ve güçlü yapıdaydı.
- Kafatasları modern insanınkinden daha uzun ve alçaktır; belirgin kaş çıkıntıları, geriye çekik alın, çıkıntılı orta yüz bölgesi ve belirgin olmayan çene ucu karakteristik özellikleri arasındadır.
- Neandertaller kısa ve tıknaz vücutları, güçlü kemikleri ve görece kısa uzuvlarıyla soğuk iklim koşullarına uyum sağlamışlardı. Erkeklerin ortalama boyunun yaklaşık 164 cm, kadınların ise 155 cm olduğu tahmin edilmektedir.
- Gelişmiş taş aletler üretmiş, ateşi kullanmış, büyük hayvanları avlamış ve bitkisel besinler de tüketmişlerdir. Bazı buluntular süs eşyaları ve sembolik davranışlarla da ilişkilendirilmektedir.
- Bazı Neandertal kalıntılarının bilinçli olarak gömüldüğüne ilişkin güçlü kanıtlar vardır. Örneğin yaklaşık 41 bin yıllık La Ferrassie 8 çocuğuna ilişkin bulgular, bedenin açılmış bir çukura bilinçli olarak yerleştirilmiş olmasıyla uyumludur. Bununla birlikte bütün Neandertal mezarları ve bunların sembolik anlam taşıyıp taşımadığı konusunda tartışmalar devam etmektedir.
- Genetik çalışmalar Neandertaller ile H. sapiens topluluklarının çiftleştiğini göstermektedir. Bu nedenle günümüzde Afrika dışındaki birçok insan topluluğunun genomunda Neandertal kökenli DNA bulunmaktadır.
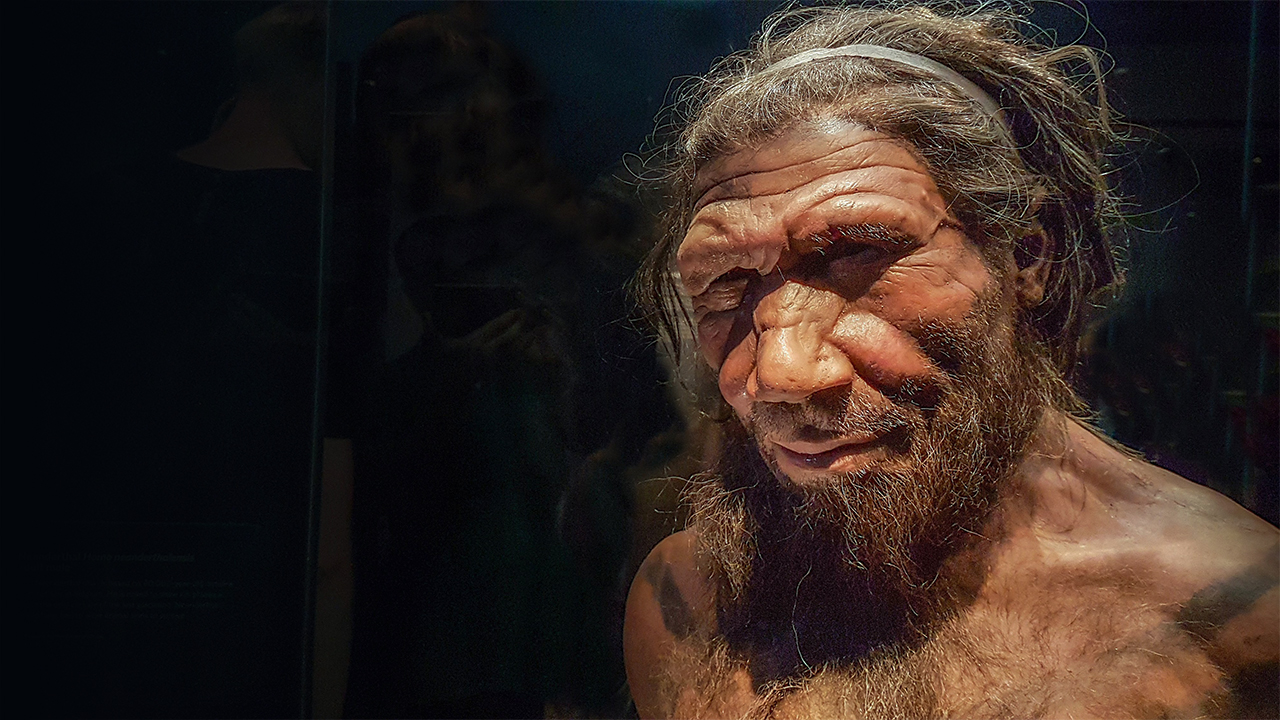
Resim: Neandertal insan rekonstrüksiyonu, Doğa Tarihi Müzesi, Londra (Fotoğraf: Flavio Massari/agefotostock/Newscom)
Neandertalleri anlatan kısa bir video.
Ayrıca “Son Neandertal Ao” filmiyle ilgili bilgi almak için tıklayın.
Homo floresiensis (Flores İnsanı veya “Hobbit”):
LB1 adı verilen oldukça eksiksiz iskelet, 2003 yılında Endonezya’nın Flores Adasındaki Liang Bua Mağarasında bulundu ve 2004 yılında Homo floresiensis olarak tanımlandı (Brown vd., 2004). Daha sonraki kazılarda başka bireylere ait kafatası, çene, diş ve iskelet kalıntıları da bulundu.
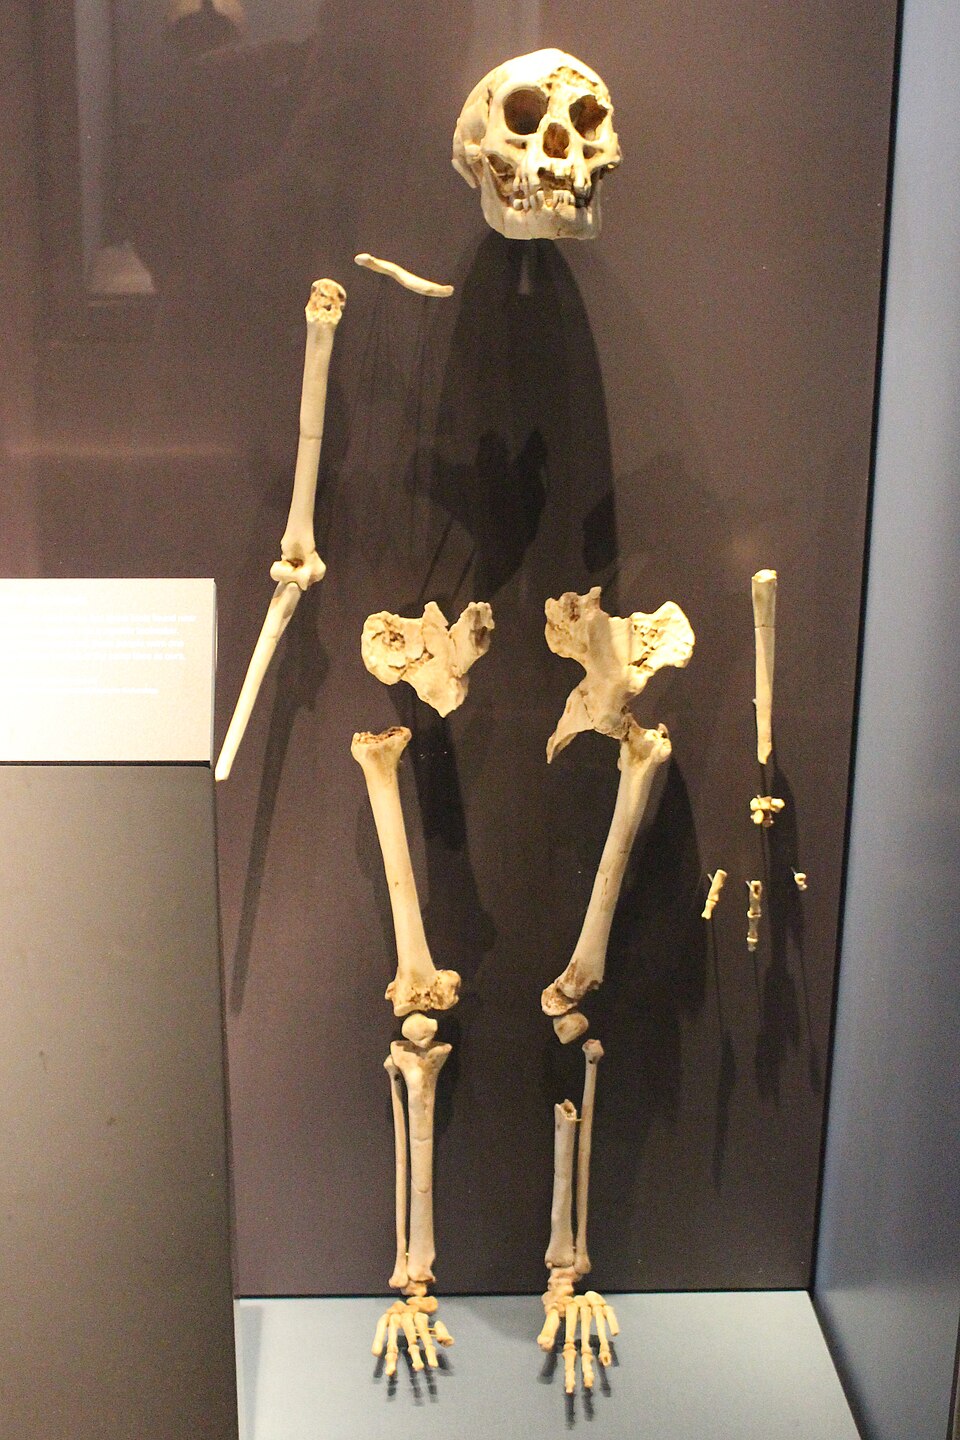
Resim: H. floresiensis (kadın) iskeleti, Doğa Tarihi Müzesi, Londra
- Liang Bua’daki H. floresiensis iskelet kalıntıları yaklaşık 100–60 bin yıl, bunlarla ilişkilendirilen taş aletler ise yaklaşık 190–50 bin yıl öncesine tarihlenmektedir.
- LB1 yetişkin bir dişiye aittir ve yaklaşık 1,06 metre boyundadır. Küçük vücut yapısı nedeniyle türe yaygın olarak “Hobbit” adı verilmiştir.
- LB1’in beyin hacminin yaklaşık 426 cm³ olduğu tahmin edilmektedir.
- H. floresiensis tamamen iki ayak üzerinde yürüyordu; ancak vücut oranları ve ayak anatomisi modern insanlardan belirgin biçimde farklıydı.
- H. floresiensis taş aletler üretip kullanmıştır. Liang Bua’da aynı dönemlere ait cüce Stegodon (fillerin soyu tükenmiş yakın akrabalarından biri) kalıntılarında bulunan kesme izleri, bu hayvanların işlendiğini göstermektedir. Ateşi kontrollü olarak kullandığı ise kesin değildir.
- Türün kökeni uzun süredir tartışılmaktadır. H. habilis gibi daha eski ve küçük yapılı bir Homo türünden türediği de öne sürülmüş olmakla birlikte, Flores’te bulunan yaklaşık 700 bin yıllık fosiller ve 2024’te yayımlanan yeni bulgular, H. floresiensis soyunun erken Asya H. erectus popülasyonlarından ada cüceleşmesi yoluyla evrimleşmiş olması görüşünü desteklemektedir.
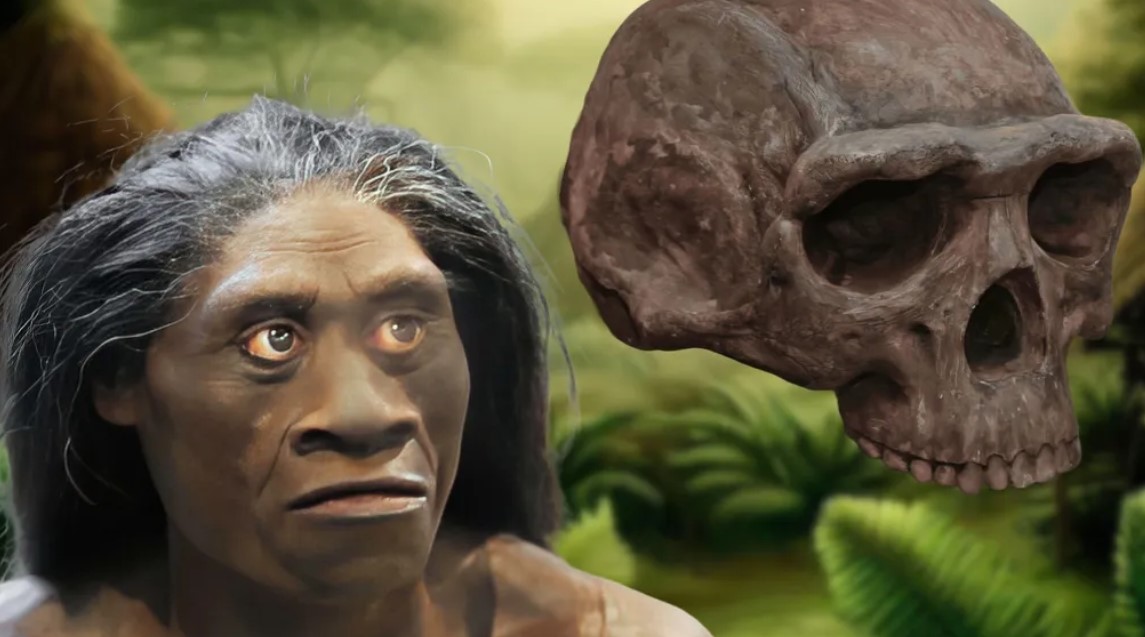
Resim: H. floresiensis temsili rekonstrüksiyonu (GpPhotoStudio / Alamy Stock Photo)
Homo luzonensis:
Filipinler’in Luzon Adası’ndaki Callao Mağarası’nda bulunan fosiller, 2019 yılında Homo luzonensis adıyla yeni bir tür olarak tanımlandı.Türün tip örneği CCH6 adı verilen, aynı bireye ait beş üst çene dişinden oluşmaktadır. Buluntular toplam 13 fosil parçasından oluşmakta ve en az üç bireyi temsil etmektedir (Détroit vd., 2019).
- Beyin hacmi bilinmemektedir; türe ait bir kafatası bulunmamıştır.
- Doğrudan tarihlendirilen fosillerden biri en az 67 bin, diğeri ise en az 50 bin yıl öncesine aittir.
- Fosiller dişler, el ve ayak kemikleri ile bir uyluk kemiği parçasından oluşmaktadır. Anatomik özellikleri ilkel ve daha türemiş özelliklerin bir bileşimini taşır; dişlerin bazı özellikleri diğer Homo türlerine benzerken, el ve ayak parmak kemiklerinin bazı özellikleri Australopithecus türlerini hatırlatmaktadır.
- El ve ayak parmak kemiklerinin kavisli yapısı tırmanmayla ilişkili özelliklerin korunduğunu düşündürmektedir; ancak fosiller sınırlı olduğundan hareket biçimi kesin olarak bilinmemektedir.
- Luzon Adası’nın Pleistosen boyunca anakaraya kara köprüsüyle bağlanmamış olması, H. luzonensis’in atalarının adaya ulaşma biçimi konusunda önemli sorular ortaya çıkarmaktadır. Adanın erken hominanlar tarafından nasıl kolonileştirildiği bilinmemektedir.
- H. luzonensis’in diğer Homo türleriyle evrimsel ilişkisi henüz kesin olarak belirlenmemiştir; mevcut değerlendirmeler büyük ölçüde fosillerin anatomik özelliklerine dayanmaktadır.
Denisova hominanı (Denisovalılar):
Denisovalılar, ilk kez Rusya’nın Sibirya bölgesindeki Denisova Mağarasında bulunan fosillerden elde edilen antik DNA’nın incelenmesiyle 2010 yılında tanımlanan arkaik bir insan grubudur. İlk genetik analizler, yaklaşık 40.000–50.000 yıl öncesine tarihlenen bir parmak kemiğinin Neandertallerden ve modern insanlardan genetik olarak farklı bir insan topluluğuna ait olduğunu ortaya koymuştur. Daha sonraki fosil ve DNA bulguları, Denisovalıların Asya’nın geniş bir bölümünde yaşamış olduğunu göstermiştir.
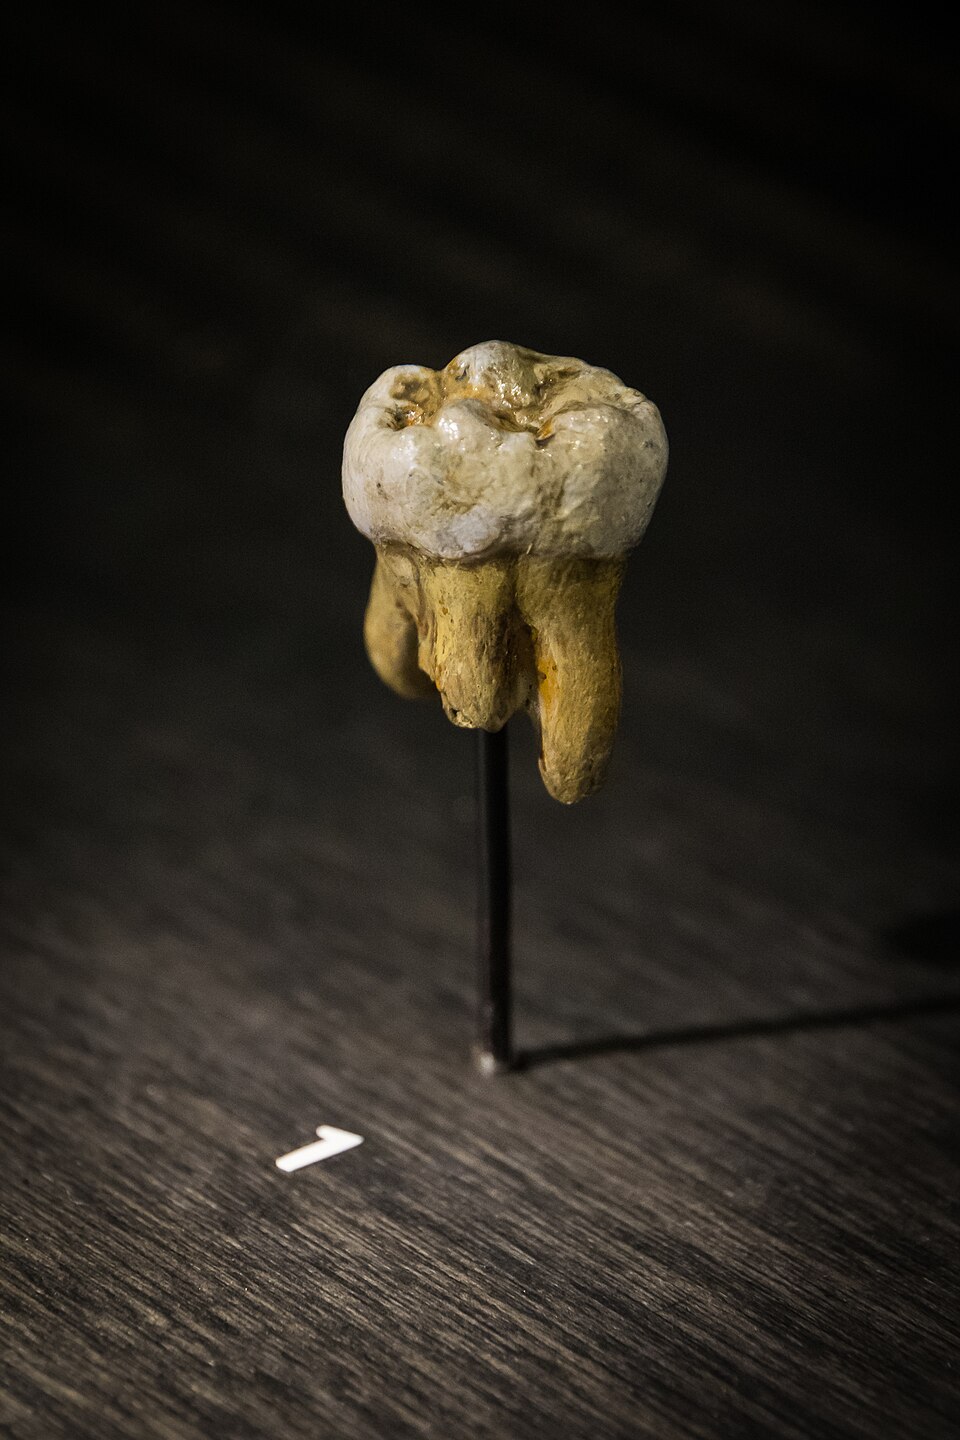
Resim: Denisova Mağarasında bulunan Denisovalıya ait azı dişi (Denisova 4)
- Denisovalılar ayrı bir Homo cinsi değildir; Homo cinsi içinde yer alan arkaik bir insan grubudur. Bilimsel sınıflandırmaları hâlen tartışmalıdır ve genellikle ayrı bir tür adı verilmeden Denisovalılar olarak anılırlar.
- Genetik çalışmalar, Denisovalılar ile Neandertallerin birbirlerinin en yakın bilinen akrabaları olduğunu ve ortak soylarının modern insan soyundan yaklaşık 600.000–750.000 yıl önce ayrıldığını göstermektedir.
- Denisovalılar ile Neandertaller yalnızca ortak ataya sahip değildi; birbirleriyle çiftleştiler. Denisova Mağarasında bulunan ve “Denny” adı verilen bir bireyin annesinin Neandertal, babasının ise Denisovalı olduğu DNA analiziyle belirlenmiştir.
- Denisovalılar modern insanlarla da çiftleşmiştir. Günümüzde özellikle Papua Yeni Gine ve diğer Okyanusya topluluklarında Denisovalılardan kalma DNA oranı yüksektir; Denisova kökenli genetik izlere Asya’daki başka topluluklarda da rastlanmaktadır.
- Denisovalılardan modern insanlara geçen bazı gen varyantlarının doğal seçilimle korunmuş olduğu bilinmektedir. En iyi bilinen örneklerden biri, Tibet Platosundaki düşük oksijen koşullarına uyumla ilişkili EPAS1 gen varyantıdır.
- Denisova Mağarası dışında Tibet Platosundaki Baishiya Karst Mağarası gibi bölgelerden elde edilen bulgular da Denisovalıların coğrafi dağılımının Sibirya ile sınırlı olmadığını göstermektedir.
Ayrıca bkz. Denisova genomunun tamamı tanımlandı.
Homo longi (Ejderha adam):
Çin’in Heilongjiang eyaletindeki Harbin kentinde bulunan ve Harbin kafatası olarak bilinen iyi korunmuş kafatası, 2021 yılında Homo longi adıyla yeni bir insan türü olarak tanımlandı. İlk çalışmalarda H. longi’nin H. sapiens’e Neandertallerden daha yakın bir soy olabileceği öne sürüldü (Ji vd., 2021; Ni vd., 2021).
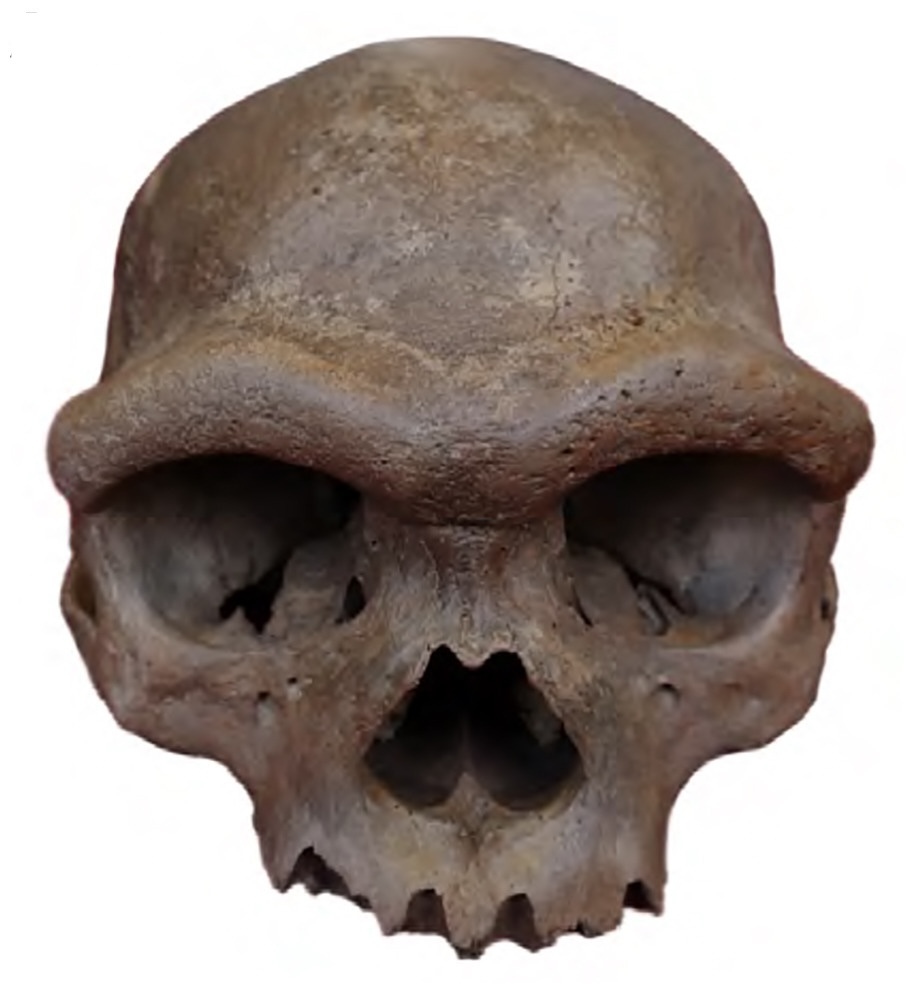
Resim: Harbin kafatası, Homo longi holotipi
- Beyin hacmi yaklaşık 1.420 cm³
- Kafatası en az 146 bin yıl öncesine tarihlenmektedir. Uzun ve alçak bir beyin kutusuna, kalın kaş çıkıntılarına, geniş göz çukurlarına ve büyük bir yüze sahip olmakla birlikte, yüzün görece düz olması gibi bazı özellikleri H. sapiens ile benzerlik göstermektedir.
- Kafatasının yaklaşık 50 yaşında bir erkeğe ait olduğu tahmin edilmektedir.
- H. longi’nin ayrı bir tür olarak sınıflandırılması tartışmalıdır. Harbin kafatasından antik DNA elde edilememiş olsa da, 2025 yılında kafatasındaki proteinler ve diş taşından elde edilen mitokondriyal DNA üzerinde yapılan çalışmalar Harbin bireyinin Denisovalı olduğunu güçlü biçimde desteklemiştir. Bu bulgular, Denisovalıların daha önce büyük ölçüde genetik verilerden bilinen fiziksel özelliklerinin anlaşılması açısından da önemlidir.
Homo sapiens (modern insan):
Homo sapiens yaklaşık 300 bin yıl önce Afrika’da ortaya çıkmıştır. Fas’taki Jebel Irhoud fosilleri yaklaşık 315 ± 34 bin yıl öncesine tarihlenirken (Hublin vd., 2017), Etiyopya’daki Omo I fosilinin 233 ± 22 bin yıldan daha eski olduğu belirlenmiştir (Vidal vd., 2022). H. sapiens Afrika dışına farklı dönemlerde göç etmiş; günümüz Afrika dışı nüfuslarının büyük bölümünün atalarıyla ilişkili başlıca yayılım yaklaşık 60–70 bin yıl önce gerçekleşmiştir. Türümüz daha sonra dünyanın farklı bölgelerine yayılarak küresel bir dağılıma ulaşmıştır.
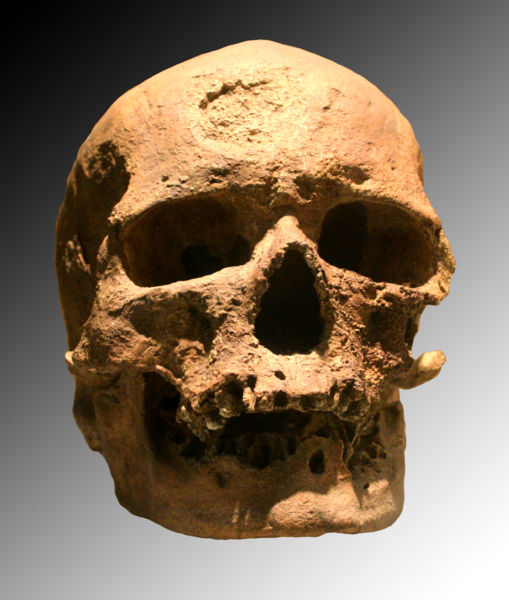
Resim: Cro-Magnon 1 (H. sapiens) kafatası, İnsan Müzesi, Paris.
- Beyin hacmi ortalama yaklaşık 1.300 cm³
- Kafatası yüksek ve yuvarlaktır; alın dik yükselir, kaş çıkıntıları küçülmüş veya büyük ölçüde kaybolmuştur. Belirgin bir çene çıkıntısı bulunur ve iskelet, daha önceki Homo türlerine kıyasla genellikle daha narin yapıdadır.
- Cro-Magnon, Avrupa’da yaşamış erken modern H. sapiens bireyleri için tarihsel olarak kullanılan bir addır; ayrı bir insan türü değildir. İsmini Fransa’nın güneybatısındaki Cro-Magnon kaya sığınağından alır. Burada 1868 yılında birkaç H. sapiens iskeleti bulunmuş, bunlardan Cro-Magnon 1 olarak adlandırılan yetişkin erkek en tanınmış örneklerden biri olmuştur. Yaklaşık 30 bin yıl öncesine tarihlenen bu birey, Avrupa’daki erken modern insanların önemli fosillerinden biridir. Cro-Magnon buluntularıyla ilişkilendirilen Üst Paleolitik kültürlerde gelişmiş taş ve kemik aletler, süs eşyaları ve kişisel bezemeler görülmektedir.
- Cro-Magnon 1 dışında Omo I, Omo II, Jebel Irhoud fosilleri ve Mungo Man gibi çok sayıda erken H. sapiens örneği bulunmaktadır. Bunlar arasında Jebel Irhoud fosilleri yaklaşık 315 ± 34 bin yıl ile bilinen en eski H. sapiens örnekleri arasındadır.
- H. sapiens’in geçirdiği evrimsel değişimler türün ortaya çıkışıyla sona ermemiştir. Son on binlerce yılda çene ve diş boyutlarında ve iskeletin genel sağlamlığında azalma eğilimi görülmektedir. Bu değişimlerde beslenme, besinlerin işlenmesi ve yaşam biçimindeki değişikliklerin rol oynadığı düşünülmektedir.
- Tarım ve hayvancılığın yaygınlaşmasıyla bazı insan topluluklarında yetişkinlikte süt şekerini sindirebilmeyi sağlayan laktaz kalıcılığı bağımsız olarak evrimleşmiş ve güçlü doğal seçilimin örneklerinden biri olmuştur.
- Tibet Platosu, And Dağları ve Etiyopya’nın yüksek bölgelerinde yaşayan topluluklarda düşük oksijen koşullarına farklı fizyolojik ve genetik uyumlar gelişmiştir. Tibetlilerde bu uyumla ilişkili EPAS1 gen varyantının Denisovalılardan gen akışı yoluyla edinildiğine ilişkin güçlü kanıtlar bulunmaktadır.
- Farklı ultraviyole ışınım düzeylerine uyumla ilişkili olarak deri pigmentasyonunu etkileyen genlerde de doğal seçilimin izleri görülmektedir. Benzer şekilde nişasta açısından zengin beslenme, yağ metabolizması ve diğer beslenme biçimleriyle ilişkili genetik varyantlar farklı insan topluluklarında seçilime uğramıştır.
- Bulaşıcı hastalıklar da insan evriminin önemli seçilim baskılarından biri olmuştur. Bağışıklık sistemiyle ilişkili çok sayıda gen, geçmişte karşılaşılan patojenlerin etkisi altında evrimleşmiş; Neandertal ve Denisovalılardan modern insanlara geçen bazı gen varyantları da bağışıklık sistemi üzerinde etkili olmuştur.
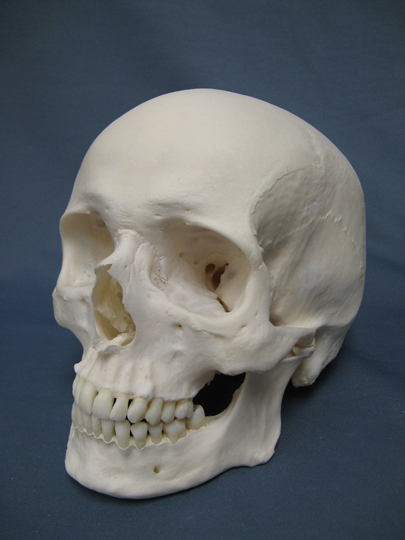
Resim: Modern insan (Homo sapiens) kafatası
Tüm bu örnekler, insan evriminin geçmişte tamamlanmış bir süreç olmadığını; H. sapiens topluluklarının çevre, beslenme, hastalıklar ve yaşam biçimindeki değişimlere bağlı olarak günümüzde de evrimleşmeye devam ettiğini göstermektedir.
Buradan, hominanların geçmişiyle ilgili güzel bir şemaya ulaşabilirsiniz.
Kaynakça:
- TalkOrigins Archive, Prominent Hominid Fossils. New Scientist, Search for Our Origins, From Darwin to Today, 2010.
- University of California, Berkeley, Understanding Evolution, Fossil Evidence and the Acceptance of Human Evolution.
- Broad Institute, Human and Chimp Genomes Reveal New Twist on Origin of Species, 2006.
- Wikipedia, List of Human Evolution Fossils.
- Steven Heslip, Time-Space Chart of Hominid Fossils, Michigan State University, 2001.